
Ursidae
La famille des ursidés (Ursidae) regroupe des mammifère terrestres de l'ordre des carnivores, caractérisés par une morphologie robuste, des membres massifs et une démarche plantigrade. Comprenant huit espèces vivantes réparties sur quatre continents, les ours occupent des milieux extraordinairement variés, des forêts tropicales d'Asie du Sud-Est aux toundras arctiques. Apparus au cours de l'Oligocène, ils constituent l'un des clades les plus jeunes au sein des Carnivora, tout en ayant développé une diversité morphologique, écologique et comportementale remarquable. Certaines espèces, comme l'ours polaire (Ursus maritimus) ou le panda géant (Ailuropoda melanoleuca), sont devenues de véritables symboles de la conservation mondiale. Malgré leur robustesse apparente, la plupart des espèces sont aujourd'hui menacées par la perte de leur habitat, le braconnage et le changement climatique.

Auteur: Oliver Goldsmith
 CC0 (Domaine public)
 DESCRIPTION
Les ursidés se distinguent par un plan corporel puissant et trapu, caractérisé par une ossature robuste, des membres lourds et une musculature volumineuse adaptée à des tâches variées : fouissement, escalade, nage et combats intraspécifiques. La taille des espèces varie considérablement au sein de la famille. Le plus petit représentant, l'ours malais (Helarctos malayanus), mesure entre 100 et 140 cm de longueur et ne pèse que 25 à 65 kg, tandis que l'ours polaire mâle adulte peut atteindre 2,8 m de longueur et dépasser 700 kg, ce qui en fait le plus grand carnivore terrestre actuel. Entre ces extrêmes, l'ours brun (Ursus arctos), avec ses nombreuses sous-espèces, présente une plasticité corporelle remarquable selon les régions et les ressources disponibles.
Le crâne des ursidés est massif, avec un rostre allongé, une boîte crânienne volumineuse et des arcades zygomatiques larges permettant l'ancrage de puissants muscles masséters. La denture, bien qu'appartenant à l'ordre des carnivores, révèle une adaptation omnivore marquée : les carnassiales sont réduites ou vestigiales, tandis que les molaires sont larges et à surface aplatie, propices au broyage de matières végétales dures. La formule dentaire typique est I 3/3, C 1/1, P 2–4/2–4, M 2/3, pour un total pouvant aller de 34 à 42 dents selon les espèces.
Le pelageest généralement épais, dense et de couleur uniforme ou contrastée selon les espèces. L'ours polaire possède une fourrure blanche ou jaunâtre, composée de poils creux améliorant l'isolation thermique dans les milieux arctiques. Le panda géant arbore un pelage noir et blanc hautement reconnaissable dont la fonction demeure encore partiellement débattue, entre camouflage et communication sociale. L'ours à lunettes (Tremarctos ornatus) présente des marques faciales claires en forme de lunettes qui lui valurent son nom vernaculaire. L'ours lippu (Melursus ursinus) se distingue quant à lui par une longue fourrure ébouriffée noire, des lèvres très mobiles et des narines occlusibles, adaptations liées à son régime insectivore spécialisé.
Les membres sont plantigrades, chaque patte portant cinq doigts munis de griffes non rétractiles robustes. Cette morphologie facilite la fouille du sol, le retournement de pierres, la montée dans les arbres chez les espèces arboricoles comme l'ours malais, ou encore la propulsion en milieu aquatique chez l'ours polaire dont les pattes antérieures font office de rames. La queue est très courte, vestigiale, contrairement à de nombreux autres carnivores. Les glandes sébacées et apocrines présentes sur les pattes jouent un rôle important dans la communication chimique, permettant aux individus de déposer des marques olfactives caractéristiques lors de leurs déplacements.
Le dimorphisme sexuel est prononcé chez la majorité des espèces : les mâles dépassent généralement les femelles de 30 à 50 % en masse corporelle. Cette différence de gabarit est en lien avec les stratégies de compétition intraspécifique pour l'accès aux femelles en période de reproduction. Enfin, les ursidés possèdent un cerveau relativement développé par rapport à leur masse corporelle, ce qui leur confère des capacités d'apprentissage, de mémorisation et de résolution de problèmes supérieures à celles de nombreux autres mammifères de gabarit comparable.
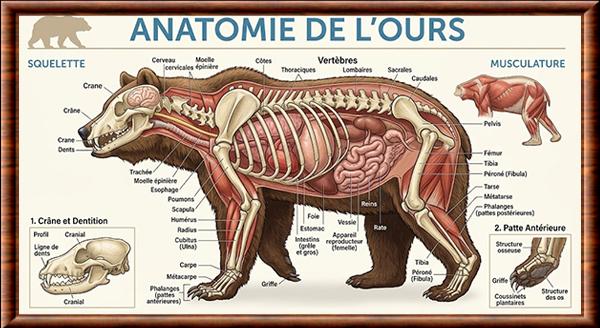
Image générée par Gemini IA
CC0 (Domaine public)HABITAT
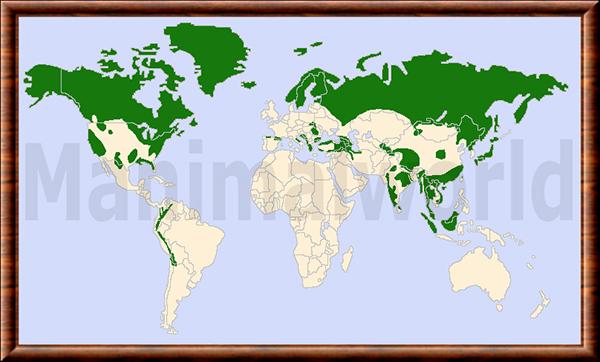
La famille des ursidés présente une répartition géographique morcelée à l'échelle planétaire, reflet à la fois de son histoire évolutive et des perturbations anthropiques subies au cours des derniers siècles. Les ours sont absents d'Australie, d'Afrique subsaharienne et de la majeure partie du Moyen-Orient. Sur les autres continents, leur présence témoigne d'une remarquable capacité d'adaptation à une vaste palette de biomes, depuis le niveau de la mer jusqu'aux zones alpines d'altitude.
L'ours polaire est circonscrit à la région circumarctique, occupant les banquises, les côtes gelées et les îles arctiques du Canada, de l'Alaska, de la Russie, du Svalbard et du Groenland. Sa survie dépend étroitement de la banquise, utilisée comme plateforme de chasse aux phoques. Le changement climatique et la réduction progressive de l'extension de la glace de mer constituent une menace directe sur l'accès à cette ressource fondamentale. L'ours brun, quant à lui, affiche la plus large aire de répartition de la famille : historiquement présent depuis l'Europe occidentale jusqu'au Japon, il occupe aujourd'hui des zones fragmentées en Europe, une vaste bande de l'Asie du Nord et de l'Asie centrale, ainsi que l'Alaska, le Canada et le nord-ouest des États-Unis.
En Asie, les ursidés sont représentés par plusieurs espèces aux distributions complémentaires. L'ours noir d'Asie (Ursus thibetanus) habite les forêts de feuillus et les zones montagneuses allant du Pakistan au Japon, en passant par la Chine méridionale et le sous-continent indien. L'ours malais, le plus tropical de la famille, se rencontre dans les forêts pluviales de basse altitude de Birmanie, de Thaïlande, de Malaisie, de Sumatra et de Bornéo. Le panda géant, endémique de Chine, est aujourd'hui confiné aux massifs montagneux du Sichuan, du Shaanxi et du Gansu, dans des forêts de bambou situées entre 1 400 et 3 500 m d'altitude.
Sur le sous-continent indien et au Sri Lanka, l'ours lippu occupe des forêts tropicales et subtropicales, des zones de prairies et des régions rocailleuses. En Amérique du Sud, l'ours à lunettes est le seul représentant actuel de la famille, présent le long de la cordillère des Andes, du Venezuela jusqu'au nord de l'Argentine, dans des habitats allant des forêts nuageuses aux zones arbustives d'altitude et aux yungas. Pour les ours, les besoins en espace sont importants. Les ours bruns mâles peuvent avoir des domaines vitaux dépassant 2 000 km² dans les régions septentrionales peu productives, tandis que les femelles maintiennent des territoires nettement plus restreints.
La fragmentation et la destruction des habitats naturels constituent la principale menace pesant sur les populations d'ours à l'échelle mondiale. L'urbanisation, la déforestation, l'expansion agricole et le développement des infrastructures de transport ont considérablement réduit les surfaces disponibles et isolé les populations les unes des autres, compromettant les flux génétiques et la viabilité à long terme de nombreuses populations. La disponibilité en nourriture, la présence de zones de repos sécurisées, de plans d'eau et de sites d'hibernation conditionnent fortement l'occupation de l'espace et la dynamique des populations locales.
© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
ÉCOLOGIE
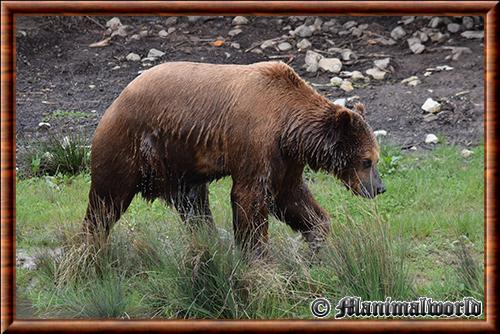
Les ursidés sont des omnivores généralistes dont le régime alimentaire varie considérablement selon les espèces, les saisons et les disponibilités locales. L'ours brun illustre parfaitement cette flexibilité : au printemps, il consomme surtout des herbes, racines et charognes; en été, il profite des fruits, des baies et des insectes; en automne, il entre en hyperphagie intensive pour constituer les réserves de graisse nécessaires à son hibernation, avec une consommation pouvant atteindre 20 000 kilocalories par jour. Les saumons constituent une ressource essentielle dans les régions côtières d'Alaska et de Colombie-Britannique, où des regroupements spectaculaires s'observent aux rapides lors des remontées de frai.
Certaines espèces ont développé des spécialisations alimentaires marquées. Le panda géant consacre jusqu'à 16 heures par jour à la consommation de bambou, dont il ingère entre 12 et 38 kg quotidiennement pour compenser la faible valeur nutritive de cette plante. L'ours lippu s'est spécialisé dans la prédation des termites et autres insectes sociaux. Il utilise ses lèvres très mobiles et ses narines occlusibles pour aspirer les insectes hors de leurs galeries par un puissant flux d'air. L'ours polaire est le plus carnivore de tous : il se nourrit principalement de phoques, chassés à l'affût à leurs trous de respiration ou attrapés sur la banquise lors des moments de vulnérabilité des proies.
La reproduction des ours est caractérisée par une faible fécondité et un investissement parental maternel exceptionnellement élevé. La plupart des espèces sont solitaires et les rencontres entre adultes se limitent généralement à la période d'accouplement. Les femelles présentent une nidation différée (implantation différée du blastocyste) qui permet de décorréler le moment de la fécondation de celui de la mise bas, en ajustant le développement foetal à l'état des réserves corporelles maternelles. La gestation effective, après implantation, dure environ 6 à 8 semaines. Les portées comptent en général un à trois oursons, nés à un stade très altricial : aveugles, dépourvus de fourrure dense et pesant moins de 500 g chez la plupart des espèces. Les jeunes restent sous la dépendance maternelle pendant un à trois ans selon les espèces.
Le comportement des ursidés combine solitarisme marqué, territorialité variable et capacités cognitives élaborées. Les individus communiquent par des marques olfactives déposées sur des arbres frottoirs, des vocalises variées et des postures codifiées lors des rencontres. L'hibernation, présente chez plusieurs espèces de régions tempérées et froides, est un phénomène physiologique distinct du sommeil ordinaire : la température corporelle baisse modérément, le métabolisme chute de 50 à 75 %, et les femelles gestantes mettent bas et allaitent leurs petits durant cette période sans se réveiller pour boire ou se nourrir. Cette aptitude unique parmi les grands mammifères est facilitée par un système de recyclage de l'azote et de mobilisation des réserves lipidiques sans équivalent connu chez d'autres mammifères de cette taille.
À l'âge adulte, les ursidés occupent généralement le sommet de la chaîne trophique de leurs écosystèmes respectifs, ce qui les exonère de la présence de prédateurs naturels réguliers. Néanmoins, les jeunes individus, les spécimens affaiblis ou les vieux sujets peuvent occasionnellement faire l'objet de prédation de la part de meutes de loups, de grands félins ou d'autres ours rivaux lors de conflits territoriaux. L'être humain demeure historiquement et de nos jours le principal agent de mortalité pour l'ensemble des espèces de la famille, à travers la chasse, le braconnage et la destruction des habitats. Les interactions conflictuelles avec les éleveurs et les agriculteurs conduisent souvent à l'élimination directe de spécimens perçus comme une menace pour le bétail ou les cultures, accentuant la pression qui pèse sur les populations sauvages. Par ailleurs, les conflits intraspécifiques représentent également une cause de mortalité non négligeable, les grands mâles adultes n'hésitant pas à tuer des oursons pour stimuler l'oestrus chez les femelles ou pour éliminer des concurrents potentiels au sein d'un même territoire.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)ÉVOLUTION
Les ursidés appartiennent à l'ordre des Carnivora et à la superfamille des Ursoidea. Leur histoire évolutive s'étend sur environ 38 millions d'années, depuis le Paléogène jusqu'à l'actuel, avec des radiations successives qui ont conduit à des formes parfois très différentes des représentants modernes. Le groupe souche des Ursidae est généralement identifié dans des formes transitionnelles proches des Hemicyonidae, de petits carnivores terrestres aux affinités ursines, bien que les relations exactes entre ces taxons demeurent l'objet de discussions phylogénétiques actives.
Le plus ancien représentant confirmé des ursidés sensu stricto est Ursavus, un petit carnivore de la taille d'un raton laveur apparu à l'Oligocène supérieur en Eurasie, il y a environ 20 à 25 millions d'années. Ce genre ancestral est parfois qualifié d'"ours auroral". À partir d'Ursavus, le clade s'est diversifié progressivement au cours du Miocène, donnant naissance à des lignées de plus en plus grandes et aux régimes alimentaires de plus en plus omnivores, parallèlement à l'expansion des zones forestières en Eurasie.
La divergence entre les deux grandes sous-familles actuelles, les Ailuropodinae (représentés aujourd'hui uniquement par le panda géant) et les Ursinae, est estimée entre 20 et 18 millions d'années. Les Ailuropodinae ont connu un rayonnement important au Miocène, avec des genres éteints comme Kretzoiarctos en Europe et Agriarctos, mais seul Ailuropoda a survécu jusqu'à nos jours. Les analyses du génome mitochondrial et nucléaire ont confirmé que le panda géant est le membre basal des ursidés actuels, séparé des autres ours par une longue lignée évolutive indépendante.
La sous-famille des Tremarctinae, aujourd'hui réduite au seul ours à lunettes, a été particulièrement diversifiée en Amérique au Pléistocène. Elle comprenait Arctodus simus, le redoutable ours à face courte d'Amérique du Nord, l'un des plus grands carnivores terrestres ayant jamais existé, avec un poids estimé à plus de 900 kg. L'extinction d'Arctodus simus à la fin du Pléistocène, contemporaine de celle de nombreux autres mégaherbivores, est généralement attribuée à une combinaison de changements climatiques et de pressions de chasse exercées par les premières populations humaines colonisant le continent américain.
Au sein des Ursinae, la phylogénie moléculaire a permis de mieux résoudre les relations entre les espèces. Il est désormais établi que l'ours polaire (Ursus maritimus) s'est différencié de l'ours brun (Ursus arctos) au cours du Pléistocène, il y a environ 400 000 à 600 000 ans selon les estimations. Ces deux espèces demeurent capables de se croiser et de produire des hybrides fertiles, ce qui illustre leur proximité génétique remarquable. Des événements d'introgression entre les deux espèces ont été documentés grâce à l'analyse de l'ADN ancien, notamment durant les périodes de réchauffement interglaciaire où leurs aires de répartition se chevauchaient davantage.
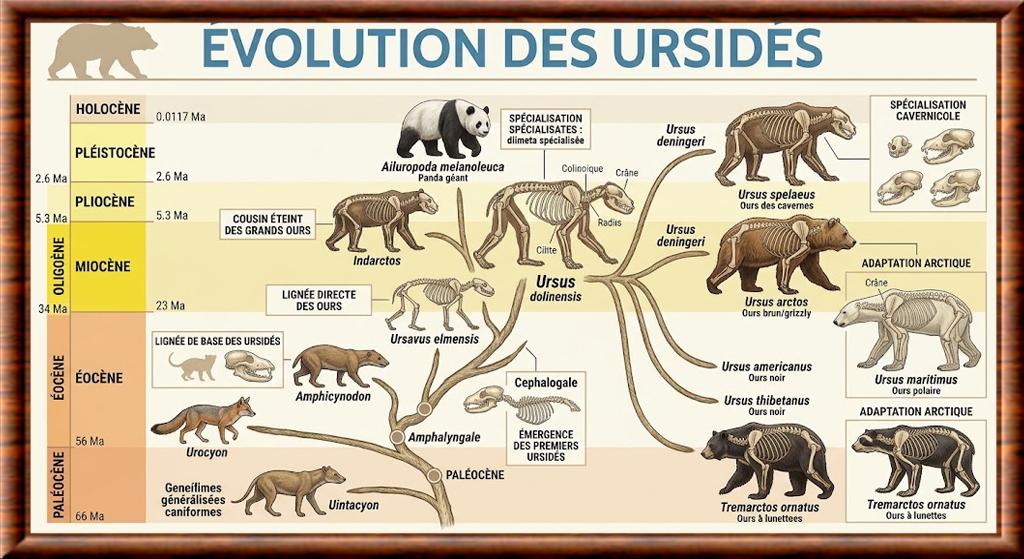
Image générée par Gemini IA
CC0 (Domaine public)STATUT ET CONSERVATION
Le statut de conservation des ursidés varie considérablement d'une espèce à l'autre, sous l'effet conjugué de la pression anthropique, du réchauffement climatique et de la déforestation. L'IUCN classe plusieurs espèces dans des catégories de menace critique ou vulnérable, en raison de l'effondrement de leurs effectifs locaux. Des programmes de protection stricts, la création de corridors écologiques, la gestion des conflits avec les activités agropastorales et des initiatives de réintroduction ciblées sont mis en oeuvre à l'échelle internationale pour enrayer le déclin de ces populations sauvages.
Les menaces qui pèsent sur l'ours polaire illustrent de manière dramatique l'impact du changement climatique global, la fonte de la banquise réduisant drastiquement son aire de chasse et compromettant sa survie à long terme. De même, les espèces tropicales subissent la déforestation massive liée à l'expansion des plantations industrielles et au commerce illégal d'organes utilisés dans la médecine traditionnelle asiatique. Les efforts de conservation exigent une collaboration transfrontalière étroite entre gouvernements, scientifiques et communautés locales, afin de concilier la protection des habitats naturels avec les besoins économiques des populations riveraines.
La sensibilisation du public et le développement d'écotourisme responsable jouent également un rôle prépondérant dans le changement des mentalités, transformant l'ours d'un nuisible potentiel en un ambassadeur précieux de la biodiversité menacée. Les plans de gestion actuels intègrent des suivis télémétriques rigoureux et des analyses génétiques pour évaluer la viabilité des populations et ajuster les mesures de protection en temps réel.
LES ESPÈCES
La famille des Ursidae compte actuellement 8 espèces vivantes à travers le monde, réparties en 5 genres et 3 sous-familles. En raison de leur vaste dispersion géographique et des variations morphologiques locales, de nombreuses sous-espèces sont traditionnellement reconnues par les autorités taxonomiques de référence, bien que certaines classifications fassent l'objet de révisions génétiques continues.
* Panda géant (Ailuropoda melanoleuca)
- Ailuropoda melanoleuca melanoleuca (Panda géant nominal)
- Ailuropoda melanoleuca qinlingensis (Panda de Qinling)
* Ours malais (Helarctos malayanus)
- Helarctos malayanus malayanus (Ours malais continental)
- Helarctos malayanus euryspilus (Ours malais de Bornéo)
* Melursus
* Ours lippu (Melursus ursinus)
- Melursus ursinus ursinus (Ours lippu d'Inde nominal)
- Melursus ursinus inornatus (Ours lippu du Sri Lanka)
* Ours à lunettes (Tremarctos ornatus)
* Ursus
* Ours brun (Ursus arctos)
- Ursus arctos alascensis (Ours brun d'Alaska)
- Ursus arctos arctos (Ours brun d'Eurasie)
- Ursus arctos beringianus (Ours brun du Kamtchatka)
- Ursus arctos californicus (Ours brun de Californie)
- Ursus arctos collaris (Ours brun Est-sibérien)
- Ursus arctos crowtheri (Ours brun de l'Atlas)
- Ursus arctos dalli (Ours brun de l'île de Dall)
- Ursus arctos gyas (Ours brun de la péninsule d'Alaska)
- Ursus arctos horribilis (Grizzly)
- Ursus arctos isabellinus (Ours Isabelle)
- Ursus arctos lasiotus (Ours brun d'Oussouri)
- Ursus arctos middendorffi (Ours Kodiak)
- Ursus arctos pruinosus (Ours bleu du Tibet)
- Ursus arctos sitkensis (Ours brun des îles ABC)
- Ursus arctos stikeenensis (Ours brun Stickeen)
- Ursus arctos syriacus (Ours brun de Syrie)
- Ursus arctos taubachensis
* Ours noir américain (Ursus americanus)
- Ursus americanus altifrontalis
- Ursus americanus amblyceps (Ours noir du Nouveau-Mexique)
- Ursus americanus americanus (Ours noir de l'Est)
- Ursus americanus californiensis (Ours noir de Californie)
- Ursus americanus carlottae (Ours noir de Haïda Gwaii)
- Ursus americanus cinnamomum (Ours noir Cannelle)
- Ursus americanus emmonsii (Ours noir argenté)
- Ursus americanus eremicus (Ours noir du Mexique)
- Ursus americanus floridanus (Ours noir de Floride)
- Ursus americanus hamiltoni (Ours noir de Terre-Neuve)
- Ursus americanus kermodei (Ours kermode)
- Ursus americanus luteolus (Ours noir de Louisiane)
- Ursus americanus machetes (Ours noir de l'ouest mexicain)
- Ursus americanus perniger (Ours noir de Kenai)
- Ursus americanus pugnax (Ours noir côtier)
- Ursus americanus vancouveri (Ours noir de Vancouver)
* Ours noir d’Asie (Ursus thibetanus)
- Ursus thibetanus formosanus (Ours noir de Taïwan)
- Ursus thibetanus gedrosianus (Ours noir du Baloutchistan)
- Ursus thibetanus japonicus (Ours noir du Japon)
- Ursus thibetanus laniger (Ours noir de l'Himalaya)
- Ursus thibetanus mupinensis (Ours noir d’Indochine)
- Ursus thibetanus thibetanus (Ours noir du Tibet)
- Ursus thibetanus ussuricus (Ours noir de Manchourie)
* Ours polaire (Ursus maritimus)
TAXONOMIE
La classification des ours a longtemps constitué un problème complexe en raison de leur diversité fossile, de leur morphologie relativement conservatrice et de la divergence rapide de plusieurs lignées. La famille des Ursidae a été établie par Gotthelf Fischer von Waldheim en 1817. Dans les classifications anciennes, les limites de la famille et son contenu ont cependant considérablement varié. Plusieurs groupes fossiles ont successivement été rapprochés des ours ou séparés d’eux, tandis que la position du panda géant a suscité d’importantes controverses. Les classifications morphologiques du XIXe et du début du XXe siècle reposaient principalement sur la dentition, la structure du crâne, les caractères des membres et d’autres traits anatomiques.
La découverte et l’étude du panda géant ont particulièrement compliqué l’histoire taxonomique des Ursidae. En raison de sa dentition et de ses adaptations alimentaires, il fut parfois rapproché des Procyonidae ou placé dans une famille distincte, les Ailuropodidae. Les études anatomiques ultérieures ont cependant progressivement renforcé ses affinités avec les ours. Les analyses moléculaires ont finalement apporté un soutien très important à son inclusion dans les ursidés. Les travaux génétiques modernes considèrent ainsi Ailuropoda melanoleuca comme la lignée la plus ancienne parmi les ursidés actuels, même si sa position a longtemps été débattue.
Le statut de l’ours à lunettes a également évolué avec l’amélioration des connaissances phylogénétiques. Il appartient au genre Tremarctos, qui représente la seule lignée actuelle d’une ancienne radiation d’ours à lunettes autrefois beaucoup plus diversifiée. Les fossiles montrent que les Tremarctinae comprenaient plusieurs formes en Amérique du Nord et en Amérique du Sud. La plupart ont disparu au cours du Pléistocène, laissant Tremarctos ornatus comme unique survivant actuel de cette lignée.
Les relations entre les espèces du groupe Ursus ont longtemps été difficiles à établir. Les premières études moléculaires fondées sur quelques gènes mitochondriaux donnaient des arbres parfois différents. Une étude publiée par Waits et ses collaborateurs en 1999, puis les travaux de Yu et ses collaborateurs en 2004, ont montré l’importance de combiner données mitochondriales et nucléaires. Les analyses plus complètes ont ensuite confirmé une radiation relativement récente et rapide des espèces actuelles. Les recherches de Kutschera et collaborateurs, ainsi que les synthèses de Kitchener et collaborateurs, ont contribué à intégrer les données génétiques, morphologiques et biogéographiques dans une classification plus cohérente.
La relation entre l’ours brun et l’ours polaire constitue un autre point majeur de l’histoire taxonomique. Les analyses moléculaires montrent que l’ours polaire est étroitement apparenté à l’ours brun et que leur histoire comprend des épisodes d’hybridation. Cette découverte a renforcé l’idée que les limites entre certaines lignées récentes peuvent être complexes lorsque des échanges génétiques se produisent après leur divergence. Les travaux paléogénomiques ont notamment montré que l’histoire évolutive de ces deux espèces ne peut pas être comprise uniquement à partir d’arbres phylogénétiques simples.
Aujourd'hui, la taxonomie des ursidés continue d'évoluer sous l'impulsion combinée des bases de données internationales de référence et des programmes de conservation de la nature. Les autorités scientifiques s'appuient désormais sur des critères intégrant à la fois la morphométrie, la biogéographie et les marqueurs génétiques pour réévaluer le statut des espèces et des nombreuses sous-espèces géographiques. Si certaines espèces comme l'ours à lunettes demeurent monotypiques, d'autres, à l'instar de l'ours brun ou de l'ours noir d'Amérique, font l'objet de discussions permanentes pour valider ou fusionner des entités sous-spécifiques en fonction des flux génétiques réels constatés sur le terrain. Cette rigueur taxonomique renouvelée revêt une importance capitale, car elle permet d'identifier précisément les unités évolutives significatives et d'optimiser les stratégies de protection face aux menaces d'extinction qui pèsent sur les populations sauvages les plus vulnérables.
CLASSIFICATION
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Caniformia |
| Famille | Ursidae |
| Décrit par | Gotthelf Fischer Waldheim |
| Date | 1817 |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Fischer von Waldheim, G. (1817). Adversaria zoologica, fasc. I, Quaedam ad Mammalium systema et genera illustranda. Mémoires de la Société Impériale des Naturalistes de Moscou, 5 : 357–446.
McKenna, M. C., & Bell, S. K. (1997). Classification of Mammals Above the Species Level. Columbia University Press.
Servheen, C., Herrero, S., & Peyton, B. (1999). Bears: Status Survey and Conservation Action Plan. IUCN/SSC Bear Specialist Group.
Christiansen, P. (1999). What size were Arctodus simus and Ursus spelaeus (Carnivora: Ursidae)? Annales Zoologici Fennici, 36(2), 93–102.
Davis, D. D. (1964). The giant panda: A morphological study of evolutionary mechanisms. Fieldiana: Zoology Memoirs, 3, 1–339.
Garshelis, D. L. (2009). Family Ursidae. In D. E. Wilson & R. A. Mittermeier (Eds.), Handbook of the Mammals of the World, Vol. 1: Carnivores (pp. 448–497). Lynx Edicions.
McLellan, B. N., & Reiner, D. C. (1994). A review of bear evolution. International Conference on Bear Research and Management, 9(1), 85–96.
Stirling, I. (Ed.). (1993). Bears: Majestic Creatures of the Wild. Rodale Press.
Bojarska, K., & Selva, N. (2012). Spatial patterns in brown bear Ursus arctos diet: The role of geographical and environmental factors. Mammal Review, 42(2), 120–143.
Derocher, A. E., Lunn, N. J., & Stirling, I. (2004). Polar bears in a warming climate. Integrative and Comparative Biology, 44(2), 163–176.
Guzmán Lenis, A. D., & Jiménez-Alvarado, J. S. (2013). Distribución y estado de conservación del oso de anteojos (Tremarctos ornatus) en Colombia. Mastozoología Neotropical, 20(2), 315–328.
Craighead, F. C. (1979). Track of the Grizzly. Sierra Club Books.
Felicetti, L. A., Robbins, C. T., & Shipley, L. A. (2003). Dietary protein content alters energy expenditure and composition of the weight gain in grizzly bears (Ursus arctos horribilis). Physiological and Biochemical Zoology, 76(2), 256–261.
Hellgren, E. C. (1998). Physiology of hibernation in bears. Ursus, 10, 467–477.
Ramsay, M. A., & Stirling, I. (1988). Reproductive biology and ecology of female polar bears (Ursus maritimus). Journal of Zoology, 214(4), 601–634.
Stirling, I. (1988). Polar Bears. University of Michigan Press.
Swenson, J. E., Sandegren, F., & Söderberg, A. (1998). Geographic expansion of an increasing brown bear population: Evidence for presaturation dispersal. Journal of Animal Ecology, 67(5), 819–826.
Fan, Z., et al. (2019). Worldwide phylogeography and history of giant pandas reveal their ancient origin and multiple refugia. Current Biology, 29(4), 664–671.
Obbard, M. E., et al. (2010). Polar bears in a warming world. In S. C. Amstrup, I. Stirling, & A. E. Derocher (Eds.), Polar Bears: A Complete Guide to Their Biology and Behavior. Johns Hopkins University Press.
Wilson, D. E., & Mittermeier, R. A. (Eds.). (2009). Handbook of the Mammals of the World, Vol. 1: Carnivores. Lynx Edicions.
Yoganand, K., et al. (2006). Is the sloth bear (Melursus ursinus) endangered in India? A preliminary review of the status. Ursus, 17(1), 71–74.
Abella, J., Montoya, P., & Morales, J. (2011). A new species of Agriarctos (Ailuridae, Carnivora) in the locality of Nombrevilla 2 (Zaragoza, Spain). Estudios Geológicos, 67(2), 187–191.
Harington, C. R. (2008). The evolution of Arctic marine mammals. Ecological Applications, 18(2 Suppl.), S23–S40.
Krause, J., et al. (2008). Mitochondrial genomes reveal an explosive radiation of extinct and extant bears near the Miocene-Pliocene boundary. BMC Evolutionary Biology, 8(1), 220.
Lindqvist, C., et al. (2010). Complete mitochondrial genome of a Pleistocene jawbone unveils the origin of polar bear. Proceedings of the National Academy of Sciences, 107(11), 5053–5057.
O'Brien, S. J., et al. (1985). A molecular solution to the riddle of the giant panda's phylogeny. Nature, 317(6033), 140–144.
Thalmann, O., et al. (2011). Mitochondrial DNA and the evolution of the brown bear. Molecular Biology and Evolution, 28(2), 1255–1265.
Qiu, Z. D., & Qi, G. Q. (1989). Ailuropod found from late Miocene deposits in Lufeng, Yunnan. Vertebrata PalAsiatica, 27(2), 153–169.
McKenna, M. C., & Bell, S. K. (1997). Classification of Mammals Above the Species Level. Columbia University Press.
Yu, L., Li, Q. W., Ryder, O. A., & Zhang, Y. P. (2004). Phylogeny of the bears (Ursidae) based on nuclear and mitochondrial genes. Molecular Phylogenetics and Evolution, 32(2), 480–494.
Zheng, S., & Barrett, J. A. (2021). Taxonomic revision and phylogenetic analyses of the giant panda complex (Ailuropoda, Ursidae, Carnivora). Historical Biology, 33(11), 2717–2730.