
Ours kermode (Ursus americanus kermodei)
L’ours Kermode (Ursus americanus kermodei) est une sous-espèce de l'ours noir américain (Usrus americanus), confinée à la côte centrale et septentrionale de la Colombie-Britannique, au Canada. Sa célébrité tient à la proportion notable d'individus au pelage blanc crème, surnommés "ours esprits" ou "ours fantômes", qui ne sont ni albinos ni apparentés à l'ours polaire, mais porteurs d'une mutation récessive du gène du récepteur de la mélanocortine. Étroitement liée à la forêt pluviale tempérée côtière et aux remontées de saumons, cette population constitue à la fois un objet d'étude majeur en génétique évolutive, un emblème culturel des Premières Nations de la région et le mammifère officiel de la province. Sa survie dépend étroitement de la préservation de son habitat forestier ancien et de la protection des stocks de saumons sauvages qui parcourent les rivières de la région.

© Sherry Kirkvold - iNaturalist
 CC-BY-NC (Certains droits réservés)
 DESCRIPTION
L'ours kermode est un ours de taille moyenne, au corps massif et compact, qui présente les caractères morphologiques généraux de l'ours noir américain. Le museau est effilé et de profil rectiligne, les oreilles sont courtes, arrondies et dressées, et les yeux, petits, demeurent toujours de teinte brune. Les membres puissants se terminent par des pattes plantigrades à cinq doigts, armés de griffes courbes, non rétractiles, courtes et robustes, bien adaptées à l'escalade des arbres et à la fouille du sol. La queue est très réduite, presque invisible sous le pelage. Les adultes mesurent généralement entre 1,3 et 1,8 mètre de longueur, pour une hauteur au garrot voisine de 90 centimètres. Le dimorphisme sexuel est net : les mâles adultes pèsent habituellement de 100 à 200 kilogrammes, tandis que les femelles, plus légères, dépassent rarement 100 kilogrammes. La masse corporelle varie fortement au cours de l'année, car les animaux accumulent d'importantes réserves de graisse à la fin de l'été et en automne, avant l'hivernage.
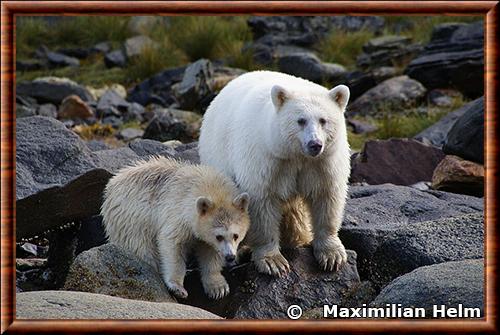
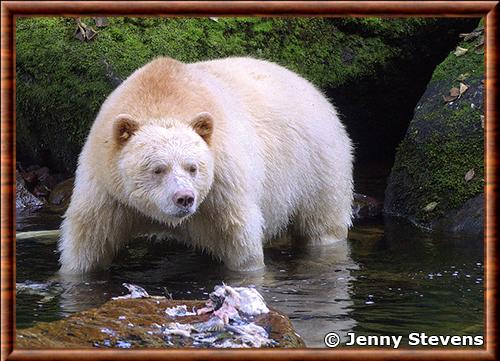
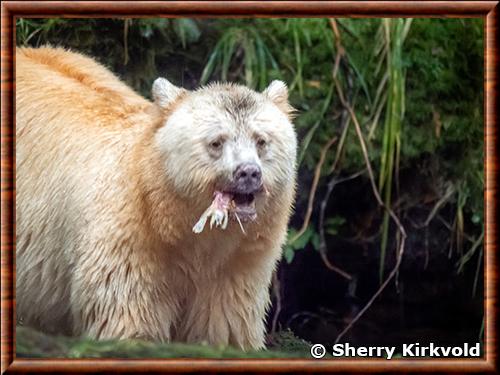
Le trait le plus remarquable de la sous-espèce est la coexistence, au sein d'une même population, de deux phénotypes de pelage. La majorité des individus sont noirs, parfois avec une tache claire sur le poitrail, tandis qu'une fraction variable arbore une robe blanc crème à doré pâle, souvent teintée de roux sur le dos et les flancs. Ces ours blancs ne sont pas albinos : leurs yeux sont foncés, leur peau n'est pas dépourvue de pigment et ils ne présentent pas les troubles visuels associés à l'albinisme véritable. Ils ne sont pas davantage apparentés à l'ours polaire ni aux ours bruns à pelage clair des îles de l'Alaska. Il s'agit d'une simple dépigmentation du pelage, qui laisse intacts les autres tissus pigmentés.
L'origine génétique de cette coloration a été élucidé au début des années 2000. Il repose sur une substitution d'un seul nucléotide dans le gène *MC1R*, qui code le récepteur de la mélanocortine 1, un acteur central de la voie de synthèse des mélanines. Cette mutation entraîne le remplacement d'un acide aminé dans la protéine et réduit la production d'eumélanine, le pigment sombre, dans les poils en croissance. L'allèle responsable est récessif : seuls les individus homozygotes pour la forme mutée sont blancs, alors que les hétérozygotes, de pelage noir, sont des porteurs sains. Deux parents noirs peuvent donc donner naissance à un ourson blanc, et une même portée peut mêler oursons noirs et blancs. Ce mécanisme explique aussi que la proportion d'ours blancs, qui n'excède guère un dixième de la population globale de la sous-espèce, atteigne des valeurs bien supérieures sur certaines îles.
Sur le plan crânien et dentaire, l'ours kermode ne se distingue pas nettement des autres populations côtières d'ours noirs américains. Il possède quarante-deux dents, avec des molaires larges et aplaties, adaptées au broyage de matières végétales, et des canines robustes qui servent à la défense et à la capture des proies. Le pelage, dense, comporte un sous-poil épais qui assure l'isolation thermique dans un climat frais et humide, et il est renouvelé par une mue estivale. L'odorat, extrêmement fin, constitue le sens dominant de l'animal, qui lui permet de repérer les carcasses, les fruits mûrs et les congénères à grande distance.

© Sherry Kirkvold - iNaturalist
CC-BY-NC (Certains droits réservés)HABITAT
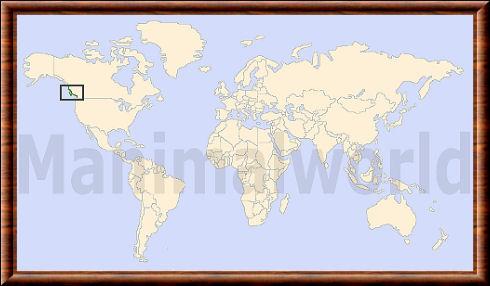
L'aire de répartition de l'ours kermode est étroitement circonscrite à la côte pacifique du nord de la Colombie-Britannique. Elle s'étend, de façon générale, du bassin de la rivière Nass, au nord, jusqu'au chenal Burke, au sud, et englobe un chapelet d'îles côtières ainsi que la frange continentale adjacente. Des individus sont signalés jusqu'aux environs de Prince Rupert, de Kitimat et de Terrace, et plus rarement à l'intérieur des terres, en direction de Hazelton. Les îles Princess Royal, Gribbell et Roderick comptent parmi les principaux bastions de la sous-espèce. L'ensemble de cet espace forme le coeur de la forêt pluviale du Grand Ours, l'un des plus vastes massifs de forêt pluviale tempérée encore largement intacts de la planète, dont la superficie se chiffre en millions d'hectares.
La répartition des deux phénotypes de pelage est loin d'être homogène. Les individus blancs sont rares sur le continent, alors qu'ils atteignent des fréquences élevées dans quelques îles : sur l'île Gribbell, située dans le territoire de la nation Gitga'at, environ quatre ours sur dix sont blancs, contre moins de deux sur dix sur l'île Princess Royal. Les estimations d'effectifs restent entourées d'une forte incertitude. Pour la seule portion insulaire de l'aire, on avance de 100 à 200 ours blancs selon certaines études, et de 220 à 310 selon d'autres, tandis que l'effectif total de la sous-espèce, toutes couleurs confondues, demeure mal connu.
L'habitat typique est une forêt pluviale tempérée côtière, soumise à un climat océanique doux et extrêmement humide, avec des précipitations annuelles qui dépassent couramment 2 500 millimètres. Le couvert est dominé par la pruche de l'Ouest (Tsuga heterophylla), le thuya géant (Thuja plicata), l'épinette de Sitka (Picea sitchensis) et le sapin gracieux (Abies amabilis), souvent âgés de plusieurs siècles et entrecoupés de tourbières, de clairières et de ruisseaux. Cette forêt ancienne offre aux ours des arbres creux et de grands chablis, qui fournissent les cavités d'hivernage. Le littoral, découpé de fjords et d'estuaires, apporte des prairies de carex, des plages riches en invertébrés et, surtout, les cours d'eau à saumons qui structurent l'ensemble de l'écosystème.
Les ours kermodes fréquentent aussi bien les basses terres, les vallées fluviales et les estuaires que les pentes plus élevées à la belle saison, et ils nagent aisément d'une île à l'autre, ce qui autorise des échanges génétiques limités entre populations insulaires. La taille des domaines vitaux varie selon le sexe, l'âge et la disponibilité alimentaire, les mâles occupant des territoires plus vastes que les femelles. Les travaux de génétique des populations ont montré que les populations insulaires sont partiellement différenciées entre elles et vis-à-vis de celles du continent, ce qui reflète à la fois l'isolement géographique, d'éventuels effets fondateurs et une dispersion limitée des individus, en particulier des femelles. Cette structuration contribue à expliquer la distribution contrastée de l'allèle responsable du pelage blanc le long de la côte.
© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
ÉCOLOGIE
L’ours kermode est un omnivore opportuniste dont le régime varie selon les saisons. Au printemps, après la sortie de la tanière, il consomme principalement les jeunes pousses, les carex, les graminées, les feuilles et les rhizomes du lysichiton d’Amérique (Lysichiton americanus), ainsi que les bourgeons, le cambium et les charognes échouées sur le littoral. Les insectes, notamment les fourmis et leurs larves, complètent cet apport. En été, les fruits sauvages deviennent essentiels, notamment les framboises, les airelles et myrtilles, le salal, le pommier du Pacifique et le sureau à grappes. L’estran fournit également des mollusques, des crabes et divers invertébrés. À l’automne, les saumons du Pacifique deviennent la principale ressource énergétique. Ces poissons permettent aux ours d’accumuler d’importantes réserves de graisse avant l’hiver. Les analyses isotopiques montrent une forte contribution des ressources marines à leur alimentation. Sur l’île Gribbell, les individus blancs semblent même exploiter davantage les saumons que les ours noirs. En transportant les carcasses loin des cours d’eau, ils transfèrent également des nutriments marins vers la forêt et participent ainsi au fonctionnement de l’écosystème.
La reproduction suit le cycle général de l’ours noir américain. Les accouplements ont lieu principalement de juin à juillet et une femelle peut s’accoupler avec plusieurs mâles. Après la fécondation, l’embryon reste en diapause avant de s’implanter vers novembre, lorsque les réserves énergétiques de la femelle sont suffisantes. La gestation effective dure environ huit semaines et les naissances surviennent en janvier ou février, dans la tanière. Une portée compte généralement un à trois oursons, le plus souvent deux. Aveugles et presque nus à la naissance, ils se développent rapidement grâce au lait maternel très riche. Les tanières sont souvent installées dans de vieux arbres creux, sous des chablis ou entre les racines, ce qui souligne l’importance des forêts anciennes. Les familles sortent entre mars et mai et les jeunes restent avec leur mère environ un an et demi. Ils apprennent progressivement à se nourrir et à pêcher par imitation. Les femelles atteignent généralement la maturité sexuelle entre trois et cinq ans et donnent naissance à intervalles d’environ deux ans.
L’ours kermode est principalement solitaire, à l’exception des femelles accompagnées de leurs petits et des périodes de reproduction. Les domaines vitaux peuvent se chevaucher, mais les conflits restent généralement limités. Lors des remontées de saumons, une hiérarchie s’établit selon la taille, l’âge et l’expérience, les grands mâles occupant les meilleurs sites de pêche. Les femelles accompagnées de jeunes évitent davantage les confrontations. Le pelage blanc semble procurer un avantage lors de la pêche diurne, les saumons distinguant moins facilement les individus clairs vus depuis l’eau. Les ours sont d’excellents grimpeurs et de bons nageurs et communiquent par des postures, des vocalisations et le marquage des arbres. En hiver, ils entrent dans une torpeur prolongée, généralement de novembre à mars. Leur température corporelle diminue modérément et ils vivent plusieurs mois sur leurs réserves graisseuses.
Les adultes ont peu de prédateurs en raison de leur taille et de leur force, tandis que les oursons sont davantage exposés. Le loup de Vancouver (Canis lupus crassodon) peut occasionnellement s’attaquer aux jeunes ou aux individus affaiblis et entrer en compétition pour les carcasses. Sur le continent, le puma (Puma concolor) représente une menace potentielle pour les jeunes. Le grizzly (Ursus arctos horribilis) constitue surtout un concurrent important pour les saumons et peut parfois tuer des ours noirs. Des mâles adultes peuvent également pratiquer l’infanticide, poussant les femelles à éviter les individus dominants et à défendre leurs petits. Aucune donnée ne montre cependant que le pelage blanc entraîne une prédation supérieure à celle des ours noirs. Les maladies, les parasites et les mauvaises années alimentaires peuvent aussi provoquer une mortalité naturelle, mais les activités humaines constituent la principale source de mortalité extérieure.
© Maximilian Helm - Flickr
 CC-BY (Certains droits réservés)
MENACES
Les menaces qui pèsent sur l'ours kermode sont étroitement liées à celles qui touchent l'écosystème de la forêt pluviale côtière. La plus ancienne est l'exploitation forestière. L'abattage à blanc des forêts anciennes supprime les grands arbres creux et les chablis dont dépendent les femelles pour mettre bas, fragmente l'habitat, multiplie les routes qui facilitent l'accès aux chasseurs et aux braconniers, et dégrade les bassins versants où frayent les saumons. Bien qu'une grande partie de la forêt pluviale du Grand Ours ait été soustraite à l'exploitation industrielle, des secteurs de la côte, en particulier à l'extérieur des zones protégées, continuent d'être exploités.
Le déclin des saumons sauvages constitue la deuxième menace majeure. Les populations ce poisson ont fortement diminué depuis plus d'un siècle sous l'effet de la surpêche, de la dégradation des cours d'eau, du réchauffement des rivières et des conditions océaniques défavorables. Le développement de l'élevage de saumons en cages sur la côte pacifique a en outre été associé à la prolifération de poux de mer, parasites dont la transmission aux saumons juvéniles sauvages réduit les effectifs. Comme l'ours kermode en tire une part essentielle de son énergie, toute diminution des remontées a des conséquences directes sur sa reproduction et sa survie. Le changement climatique accentue ces pressions en modifiant le régime des précipitations, le débit des cours d'eau et la productivité marine.
La chasse représente un facteur de mortalité supplémentaire. Si la législation provinciale interdit en principe l'abattage des individus blancs, la chasse de l'ours noir demeure autorisée sur une grande partie de l'aire de la sous-espèce, de sorte que des ours noirs, porteurs de l'allèle responsable du pelage blanc, sont tués chaque année. La disparition de ces porteurs affaiblit le réservoir génétique qui assure la présence future des ours blancs. Ceux-ci ne sont pas non plus à l'abri du braconnage. En 2017, la Colombie-Britannique a mis fin à la chasse sportive au grizzly sur l'ensemble de son territoire, y compris dans la forêt pluviale du Grand Ours, mais la chasse de l'ours noir est restée légale.
Les caractéristiques démographiques et génétiques de la sous-espèce ajoutent une fragilité propre. Les populations insulaires sont de petite taille et partiellement isolées, ce qui les expose à la dérive génétique, à la consanguinité et aux fluctuations aléatoires d'effectifs. Les analyses de génétique des populations ont montré que la fréquence de l'allèle blanc varie fortement d'une île à l'autre et que son maintien dépend d'un équilibre entre dérive, sélection et structure des populations, un équilibre que la perte d'habitat ou la réduction des effectifs pourrait rompre.
S'y ajoutent des risques d'origine industrielle. Le projet d'oléoduc "Northern Gateway", qui aurait entraîné la circulation de pétroliers dans les eaux de la côte nord, a suscité une forte opposition en raison du danger d'un déversement pour les estuaires et les ressources marines dont dépendent les ours. Le projet a été abandonné en 2016, mais d'autres pressions, comme le trafic maritime, les activités récréatives non encadrées et les développements miniers, persistent.
© Jenny Stevens - iNaturalist
CC-BY-NC (Certains droits réservés)CONSERVATION
La sous-espèce n'a pas fait l'objet d'une évaluation distincte dans la Liste rouge de l'IUCN. L'espèce Ursus americanus, prise dans son ensemble, est classée en "Préoccupation mineure", en raison de sa vaste répartition et de ses effectifs globalement stables, mais ce statut ne rend pas compte de la situation locale de l'ours kermode, dont l'aire est restreinte et dont une partie de la valeur biologique tient à la présence du phénotype blanc. Au niveau provincial, la sous-espèce fait l'objet d'un suivi par le centre de données sur la conservation de la Colombie-Britannique. Elle a été désignée mammifère officiel de la province en 2006, une reconnaissance symbolique qui traduit son importance culturelle et écologique.
La conservation de l'ours kermode passe d'abord par celle de son habitat. En 2006, un accord de gestion du territoire conclu entre le gouvernement provincial, les Premières Nations, les organisations environnementales et l'industrie forestière a permis de protéger de vastes portions de la côte centrale, soit près de 18 000 kilomètres carrés. Cet accord a été prolongé par les ententes de 2016 sur la forêt pluviale du Grand Ours, qui reposent sur une gestion écosystémique de la forêt et soustraient à l'exploitation commerciale la grande majorité du massif, tout en laissant une part limitée à l'exploitation encadrée. Les nations Kitasoo/Xai'xais, Gitga'at et d'autres communautés côtières ont joué un rôle central dans ces négociations et gèrent aujourd'hui, en partenariat avec la province, des zones protégées et des activités de surveillance. En 2019, la loi fédérale sur le moratoire relatif aux pétroliers a interdit le transport de pétrole brut par de gros pétroliers le long de la côte nord de la Colombie-Britannique, réduisant le risque d'une catastrophe maritime.
Les mesures de gestion de la chasse constituent un second volet. Plusieurs nations de la côte ont proclamé l'interdiction de la chasse sportive aux ours sur leurs territoires, et la fin de la chasse au grizzly en 2017 a diminué les risques de confusion et de prélèvement accidentel. Les organisations de conservation et de nombreuses communautés réclament toutefois l'interdiction de la chasse de l'ours noir dans l'aire de la sous-espèce, afin de protéger les porteurs de l'allèle blanc. La protection des rivières à saumons, la réduction de l'impact de l'aquaculture et la gestion des pêcheries constituent des conditions tout aussi importantes.
Enfin, la recherche et le suivi scientifique sont indispensables. L'échantillonnage non invasif de poils et d'excréments, combiné à l'analyse génétique, permet d'estimer les effectifs, de suivre la fréquence de l'allèle blanc et d'évaluer les échanges entre îles sans perturber les animaux. Le tourisme d'observation, notamment celui qui est développé et géré par les nations Kitasoo/Xai'xais et Gitga'at, apporte aux communautés des revenus qui encouragent la préservation du milieu, à condition d'être strictement encadré pour limiter le dérangement. Cette combinaison de protection territoriale, de gouvernance autochtone et de recherche constitue l'un des exemples les plus aboutis de conservation d'une population emblématique en Amérique du Nord.
© Sherry Kirkvold - iNaturalist
CC-BY-NC (Certains droits réservés)CROYANCES
Bien avant sa description scientifique, l'ours blanc de la côte pacifique occupait une place importante dans les traditions des peuples autochtones de la région. Les locuteurs tsimshian le désignent sous le nom de "moksgm'ol", que l'on traduit en général par "ours blanc", tandis que l'appellation d'"ours esprit", devenue courante dans la langue anglaise, rend compte de la dimension spirituelle qui lui est attribuée. Les Gitga'at de Hartley Bay, les Kitasoo/Xai'xais de Klemtu, les Haisla et d'autres nations côtières partagent avec l'animal un territoire depuis des millénaires et ont toujours entretenu avec lui un rapport empreint de respect.
Selon un récit largement rapporté, le Corbeau, figure créatrice centrale des traditions de la côte nord-ouest, aurait décidé, à la fin de la dernière glaciation, de transformer un ours noir sur dix en ours blanc afin de rappeler aux humains l'époque où le monde était recouvert de glace. Ces ours devaient vivre en paix dans une forêt préservée, à l'abri de la chasse, comme le symbole d'un monde pacifié. Dans de nombreuses communautés, on évitait de chasser l'ours blanc, et l'on s'abstenait de révéler aux étrangers l'endroit où il vivait, un silence qui a longtemps protégé l'animal. Ces récits se sont transmis oralement de génération en génération, et ont été consignés par certains ethnographes, notamment dans les recueils de mythes tsimshian.
L'ours blanc est ainsi perçu comme un être investi d'une force spirituelle, médiateur entre le monde des vivants et celui des esprits, et gardien du lien entre les humains et la forêt. Cette représentation explique en partie l'attitude des communautés autochtones, qui considèrent la protection de l'ours comme une obligation morale autant que comme un enjeu écologique. Elle explique aussi pourquoi plusieurs nations de la côte se sont engagées dans la défense de la forêt pluviale du Grand Ours, en faisant de l'ours esprit l'emblème de leurs revendications territoriales et environnementales.
Dans la société contemporaine, l'ours kermode est devenu un symbole de la sauvegarde de la nature sauvage et de la réconciliation entre peuples autochtones et société canadienne. Les campagnes menées par des organisations environnementales pour la protection de la forêt pluviale du Grand Ours l'ont placé au centre de leur communication, et l'ours blanc a fini par figurer sur des emblèmes régionaux et provinciaux. Il inspire des oeuvres littéraires et artistiques, et l'image de l'"ours esprit" est même utilisée comme mascotte dans des initiatives de défense des droits des enfants des Premières Nations. Pour les visiteurs, la rencontre d'un ours blanc au bord d'une rivière à saumons est souvent décrite comme une expérience quasi spirituelle, ce qui renforce l'attachement du public à la sous-espèce et à son milieu.
Ces croyances ne relèvent pas seulement du folklore. Elles constituent un exemple de savoir écologique traditionnel qui, par ses interdits de chasse et sa discrétion, a contribué de façon concrète à la préservation de l'animal. Elles rappellent aussi que la valeur d'une sous-espèce ne se mesure pas uniquement à sa position taxonomique ou à son statut de conservation, mais aussi aux significations que les sociétés humaines lui attribuent.

© Sherry Kirkvold - iNaturalist
CC-BY-NC (Certains droits réservés)TAXONOMIE
L'ours kermode s'inscrit dans l'histoire de la classification des ours noirs d'Amérique du Nord, dont l'espèce a été décrite par le naturaliste allemand Peter Simon Pallas en 1780 sous le nom d'Ursus americanus, à partir de spécimens de la côte est du continent. Le genre Ursus avait été établi par Linné en 1758. Au cours du XIXe siècle et dans la première moitié du XXe, l'ours noir fut parfois placé dans un genre distinct, Euarctos, avant que les analyses morphologiques puis moléculaires ne confirment son appartenance à Ursus. La diversité de formes régionales décrites par la suite, souvent à partir de quelques crânes ou de quelques peaux, donna lieu à une profusion de noms spécifiques ou subspécifiques, dont beaucoup ont été ultérieurement synonymisés.
C'est dans ce contexte que William Temple Hornaday, zoologiste à la Société zoologique de New York, décrivit en 1905 l'ours blanc de Colombie-Britannique sous le nom d'Ursus kermodei. Intrigué dès 1900 par une peau d'un blanc crème qu'il avait observée parmi des pelleteries provenant de Victoria, il avait sollicité l'aide de Francis Kermode, directeur du Musée provincial de la Colombie-Britannique, qui lui procura des spécimens et des informations. Hornaday dédia le taxon à son collaborateur et le considéra comme une espèce nouvelle, distincte de l'ours noir, que l'on ne devait pas confondre avec l'ours polaire. Sa conviction reposait sur la couleur remarquable de l'animal et sur son isolement géographique apparent, mais pas sur une étude comparative approfondie de la morphologie crânienne.
Cette position fut rapidement remise en cause. Les mammalogistes constatèrent que les ours blancs de la côte appartenaient à la même lignée que les ours noirs de la région et qu'ils n'en différaient guère que par la couleur de leur pelage. Au cours du XXe siècle, le taxon fut ainsi rétrogradé au rang de sous-espèce, statut sous lequel il est reconnu dans les grands catalogues de référence, notamment dans les ouvrages d'E. Raymond Hall, qui reconnaissait seize sous-espèces d'ours noir, et dans la troisième édition de Mammal Species of the World (2005). L'ours kermode y figure sous le nom d'Ursus americanus kermodei.
La validité de cette sous-espèce a été examinée à nouveau avec l'essor de la génétique. L'identification, en 2001, du déterminisme mendélien de la coloration blanche, fondé sur une mutation du gène MC1R, a démontré que la couleur ne pouvait à elle seule définir un taxon, puisque l'allèle blanc est présent, à de faibles fréquences, dans des populations voisines et que des individus blancs naissent parfois en dehors de l'aire reconnue de la sous-espèce. La reconnaissance de kermodei repose donc moins sur la couleur que sur la géographie et sur la structure génétique des populations côtières. Les travaux de phylogéographie fondés sur l'ADN mitochondrial ont mis en évidence une différenciation marquée entre les ours noirs de la côte pacifique, qui regroupent les populations de la côte nord, de l'archipel de Haida Gwaii et de l'île de Vancouver, et ceux de l'intérieur du continent, ce qui s'accorde avec la reconnaissance de lignées côtières distinctes.
Les analyses plus récentes, portant sur de nombreux marqueurs nucléaires et mitochondriaux, ont identifié plusieurs grandes lignées d'ours noirs, dont l'origine est attribuée à des refuges glaciaires distincts durant le Pléistocène, suivis de recolonisations et de brassages partiels après le retrait des glaciers. L'ours kermode est rattaché à la lignée occidentale. Ces résultats invitent à considérer les sous-espèces d'ours noirs comme des unités provisoires plutôt que comme des entités rigoureusement définies, dont les limites restent débattues. Dans une perspective de conservation, l'ours kermode est donc considéré comme une population d'une valeur évolutive et culturelle particulière, dont la reconnaissance taxonomique, quelle qu'en soit l'évolution future, ne diminue pas la nécessité de la protéger.

© Sherry Kirkvold - iNaturalist
CC-BY-NC (Certains droits réservés)CLASSIFICATION
| Nom commun | Ours kermode |
| Autre nom | Ours esprit |
| English name | Kermode bear Spirit bear |
| Español nombre | Oso Kermode |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Caniformia |
| Famille | Ursidae |
| Sous-famille | Ursinae |
| Genre | Ursus |
| Espèce | Ursus americanus |
| Nom trinominal | Ursus americanus kermodei |
| Décrit par | William Hornaday |
| Date | 1905 |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Hornaday, W. T. (1905). The American Natural History, New York, Charles Scribner's Sons.
Historica Canada. (s. d.). *Spirit Bear*. Dans *L'Encyclopédie canadienne / The Canadian Encyclopedia*.
Pelton, M. R. (1982). Black bear (*Ursus americanus*). Dans J. A. Chapman & G. A. Feldhamer (dir.), Wild Mammals of North America: Biology, Management, and Economics (p. 504-514). Baltimore : Johns Hopkins University Press.
Ritland, K., Newton, C. & Marshall, H. D. (2001). Inheritance and population structure of the white-phased “Kermode” black bear. *Current Biology*, 11(18), 1468-1472.
Marshall, H. D. & Ritland, K. (2002). Genetic diversity and differentiation of Kermode bear populations. *Molecular Ecology*, 11(4), 685-697.
Meidinger, D. & Pojar, J. (dir.). (1991). Ecosystems of British Columbia* (Special Report Series 6). Victoria : B.C. Ministry of Forests.
Helfield, J. M. & Naiman, R. J. (2006). Keystone interactions: salmon and bear in riparian forests of Alaska. *Ecosystems*, 9(2), 167-180.
Reimchen, T. E. (2000). Some ecological and evolutionary aspects of bear–salmon interactions in coastal British Columbia. *Canadian Journal of Zoology*, 78(3), 448-457.
Reimchen, T. E. & Klinka, D. R. (2017). Niche differentiation between coat colour morphs in the Kermode bear (Ursidae) of coastal British Columbia. *Biological Journal of the Linnean Society*, 122(2), 274-285.
Davis, H. (1996). *Characteristics and selection of winter dens by black bears in coastal British Columbia* (mémoire de maîtrise inédit). Simon Fraser University, Burnaby.
Samson, C. & Huot, J. (1995). Reproductive biology of female black bears in relation to body mass in early winter. *Journal of Mammalogy*, 76(1), 68-77.
Klinka, D. R. & Reimchen, T. E. (2009). Adaptive coat colour polymorphism in the Kermode bear of coastal British Columbia. *Biological Journal of the Linnean Society*, 98(3), 479-488.
Reimchen, T. E. (1998). Nocturnal foraging behaviour of black bears, *Ursus americanus*, on Moresby Island, British Columbia. *Canadian Field-Naturalist*, 112(3), 446-450.
Darimont, C. T., Price, M. H. H., Winchester, N. N., Gordon-Walker, J. & Paquet, P. C. (2004). Predators in natural fragments: foraging ecology of wolves in British Columbia’s central and north coast archipelago. *Journal of Biogeography*, 31(11), 1867-1877.
Garshelis, D. L. (1994). Density-dependent population regulation of black bears. Dans M. Taylor (dir.), *Density-dependent population regulation of black, brown, and polar bears* (International Conference on Bear Research and Management, Monograph Series 3, p. 3-14).
Gresh, T., Lichatowich, J. & Schoonmaker, P. (2000). An estimation of historic and current levels of salmon production in the Northeast Pacific ecosystem: evidence of a nutrient deficit in the freshwater systems of the Pacific Northwest. *Fisheries*, 25(1), 15-21.
Hedrick, P. W. & Ritland, K. (2012). Population genetics of the white-phased “Spirit” black bear of British Columbia. *Evolution*, 66(2), 305-314.
Krkošek, M., Ford, J. S., Morton, A., Lele, S., Myers, R. A. & Lewis, M. A. (2007). Declining wild salmon populations in relation to parasites from farm salmon. *Science*, 318(5857), 1772-1775.
Garshelis, D. L., Scheick, B. K., Doan-Crider, D. L., Beecham, J. J. & Obbard, M. E. (2016). *Ursus americanus*. *The IUCN Red List of Threatened Species 2016*: e.T41687A45034604.
Price, K., Roburn, A. & MacKinnon, A. (2009). Ecosystem-based management in the Great Bear Rainforest. *Forest Ecology and Management*, 258(4), 495-503.
Boas, F. (1916). Tsimshian mythology. Dans *Thirty-first Annual Report of the Bureau of American Ethnology, 1909-1910* (p. 29-1037). Washington : Smithsonian Institution.
Russell, C. (2003). *Spirit Bear: Encounters with the White Bear of the Rainforest*. Toronto : Key Porter Books.
Byun, S. A., Koop, B. F. & Reimchen, T. E. (1997). North American black bear mtDNA phylogeography: implications for morphology and the Haida Gwaii glacial refugium controversy. *Evolution*, 51(5), 1647-1653.
Hall, E. R. (1981). *The Mammals of North America* (2e éd.). New York : John Wiley & Sons.
Pallas, P. S. (1780). *Spicilegia zoologica* (fasc. 14). Berlin : G. A. Lange.
Puckett, E. E., Etter, P. D., Johnson, E. A. & Eggert, L. S. (2015). Phylogeographic analyses of American black bears (*Ursus americanus*) suggest four glacial refugia and complex patterns of postglacial admixture. *Molecular Biology and Evolution*, 32(9), 2338-2350.
Wooding, S. & Ward, R. (1997). hylogeography and Pleistocene evolution in the North American black bear. *Molecular Biology and Evolution*, 14(11), 1096-1105.