
Ours polaire (Ursus maritimus)
L’ours polaire (Ursus maritimus) est le plus grand carnivore terrestre actuel et le prédateur au sommet des écosystèmes marins arctiques. Membre de la famille des ursidés (Ursidae), il se distingue de tous ses congénères par un mode de vie étroitement lié à la banquise, qu’il utilise comme plateforme de chasse, de déplacement et, pour une partie des populations, de reproduction. Son corps massif, sa fourrure dense, son épaisse couche de graisse et son régime presque exclusivement composé de phoques traduisent une spécialisation poussée, apparue à l’échelle des temps géologiques récents. Répandu autour du pôle Nord dans cinq pays, il est organisé en une vingtaine de sous-populations dont les trajectoires diffèrent. Dépendant d’une glace de mer en recul rapide, il est devenu un emblème de la crise climatique et un sujet majeur de recherche. L’ours polaire est également appelé Ours blanc.

© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
 DESCRIPTION
L’ours polaire est le plus grand des ursidés actuels et le plus grand carnivore terrestre, avec une masse comparable à celle des plus gros ours bruns côtiers. Les mâles adultes mesurent généralement de 2,4 à 3 mètres et pèsent le plus souvent entre 350 et 600 kilogrammes, quelques individus exceptionnels dépassant la tonne, tandis que les femelles atteignent de 1,8 à 2,4 mètres pour 150 à 300 kilogrammes. À la naissance, le petit ne pèse qu’environ 600 grammes. La masse varie fortement selon les saisons, les femelles gestantes pouvant perdre près de la moitié de leur poids pendant leur jeûne en tanière, et selon les régions, les ours de la baie d’Hudson ou de la mer de Beaufort différant sensiblement de ceux du Svalbard.
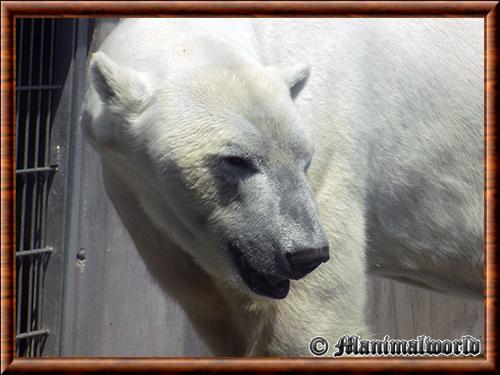
La silhouette est plus allongée que celle des autres ours, avec un cou long et mince, un crâne étroit et aplati, un museau effilé et de petites oreilles arrondies qui limitent les pertes de chaleur. La dentition reflète un régime carné : les carnassières sont tranchantes et les molaires, moins larges que chez l’ours brun, sont peu adaptées au broyage de matières végétales. Les membres antérieurs sont puissants et les pattes très larges, jusqu’à une trentaine de centimètres chez les grands mâles. La plante est couverte de papilles rugueuses qui améliorent l’adhérence sur la glace, de courtes palmures facilitent la nage, et les griffes, courtes, recourbées et non rétractiles, servent à saisir les proies et à s’ancrer sur les surfaces glissantes.
La fourrure est l’un des traits les plus célèbres de l’espèce. Elle associe un sous-poil dense et isolant à de longs poils de jarre. Contrairement à une idée répandue, ces poils ne sont pas blancs mais translucides et creux; la teinte blanche à jaunâtre que l’on perçoit résulte de la diffusion de la lumière, et elle jaunit en été ou avec l’âge. Chez des animaux captifs, des algues colonisant les poils ont parfois donné une coloration verdâtre. La peau, elle, est noire, ce qui favorise l’absorption du rayonnement solaire. Sous cette peau se trouve une couche de graisse pouvant dépasser dix centimètres à la fin de l’automne, qui assure à la fois l’isolation thermique, la flottabilité et une réserve d’énergie. L’ensemble est si efficace que l’animal supporte mal l’effort prolongé par temps doux.
Les sens sont bien développés, en particulier l’odorat, qui permet de repérer un phoque sous une épaisseur importante de neige et de détecter une carcasse à grande distance, parfois sur plusieurs kilomètres selon le vent. La vue et l’ouïe sont correctes sans égaler l’olfaction. La longévité atteint couramment vingt à vingt-cinq ans en nature, et dépasse trente ans en captivité.

© Maksim Antipin - iNaturalist
 CC-BY-NC (Certains droits réservés)
HABITAT
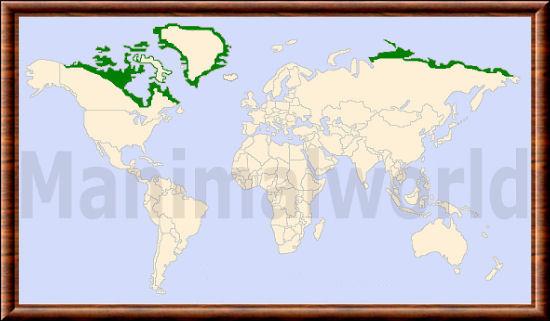
L’ours polaire est circumpolaire et occupe l’Arctique dans cinq pays dont le Canada, les États-Unis (Alaska), la Russie, le Groenland (Danemark) et la Norvège (archipel du Svalbard). Sa limite septentrionale atteint les glaces situées au-delà de 88° de latitude nord, tandis que sa limite méridionale correspond à la bordure des glaces saisonnières, jusque dans la baie James, au Canada, et jusqu’au Labrador et à Terre-Neuve lors des hivers où la glace dérive vers le sud. Des individus errants, portés par la dérive des glaces, ont même atteint l’Islande.
L’espèce est répartie en sous-populations reconnues par le Groupe de spécialistes de l’ours polaire de l’IUCN, au nombre de vingt depuis la reconnaissance de celle du sud-est du Groenland. La population mondiale est estimée à environ 26 000 individus (entre 22 000 et 31 000), une évaluation datant de 2015 qui n’a pas été formellement révisée depuis. Le Canada abrite à lui seul une large part des ours, de l’ordre de 60 %. Les contours de ces unités reposent sur les déplacements d’animaux suivis par télémétrie, sur la génétique et sur l’écologie des glaces plutôt que sur des barrières nettes, les échanges entre unités voisines étant fréquents. Les plus fortes densités se rencontrent dans l’archipel arctique canadien, la baie de Baffin, la baie d’Hudson, les mers de Beaufort et des Tchouktches, la mer de Barents et la mer de Kara.
Le milieu de vie est la banquise, en particulier les glaces saisonnières et annuelles des plateaux continentaux, où les courants et la productivité biologique concentrent les phoques annelés (Pusa hispida) et les phoques barbus (Erignathus barbatus). L’ours sélectionne les zones de glace mobile, les chenaux, les polynies et les fronts de glace, où les proies sont accessibles en surface. Ces habitats sont bien plus riches que la glace pluriannuelle du bassin polaire central, pauvre en proies. Les spécialistes distinguent quatre grandes écorégions, définies par la dynamique de la glace : glace saisonnière, comme dans la baie d’Hudson ou la mer de Barents, où la banquise disparaît en été; glace divergente, où elle s’éloigne des côtes; glace convergente, où elle s’accumule contre elles; et archipel, où la glace reste plus stable entre les îles.
Les ours polaires sont très mobiles. Les domaines vitaux se comptent en dizaines, voire en centaines de milliers de kilomètres carrés, et des femelles suivies par satellite en mer de Beaufort ont effectué des nages ininterrompues de plusieurs centaines de kilomètres, parfois en perdant leur petit. À terre, selon les régions, les ours occupent des côtes ou des collines pour la mise bas en tanière, parfois à plusieurs dizaines de kilomètres de la mer, ou des îles qui servent de refuge estival. Le Svalbard, l’ouest de la baie d’Hudson, la côte nord de l’Alaska et l’île Wrangel comptent des zones de tanières terrestres bien étudiées, tandis qu’en mer de Beaufort des tanières sont aussi creusées dans la glace dérivante.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)ALIMENTATION
L’ours polaire est un carnivore dont l’essentiel du régime provient de phoques, surtout du phoque annelé (Pusa hispida) et du phoque barbu (Erignathus barbatus), auxquels s’ajoutent localement le phoque du Groenland (Pagophilus groenlandicus), le phoque à capuchon (Cystophora cristata) et plus rarement le phoque commun (Phoca vitulina). Il consomme avant tout la peau et la graisse, très riches en énergie, et laisse souvent le reste de la carcasse aux renards polaires et à d’autres charognards.
Trois techniques de chasse principales sont décrites. La plus importante est la chasse à l’affût devant un trou de respiration : l’ours se poste, immobile, parfois de nombreuses heures, et frappe le phoque lorsqu’il vient respirer. Au printemps, il repère aussi les tanières de mise bas du phoque annelé, creusées sous la neige, et les défonce en bondissant pour atteindre les nouveau-nés. Enfin, il s’approche à pas lents de phoques au repos sur la glace pour les saisir d’une charge soudaine. Les jeunes phoques annelés, particulièrement gras, constituent une ressource énergétique majeure à la fin du printemps et au début de l’été, période pendant laquelle les ours accumulent la plupart des réserves qui leur permettront de jeûner.
Quand les phoques sont rares ou inaccessibles, notamment pendant la période sans glace, l’ours polaire élargit son régime. Il s’attaque au morse et au béluga, à la faveur de piégeages dans les glaces, et charogne volontiers des carcasses de baleine, en particulier de baleine du Groenland (Balaena mysticetus), qui se concentrent sur certaines côtes de l’Alaska et de Russie. À terre, des observations documentent la consommation d’oeufs et de poussins d’oiseaux marins, de rennes, de baies, d’herbes, de varech et même d’ombles chevaliers. Ces apports restent généralement trop limités pour compenser la perte de phoques.
La vie de l’ours polaire repose sur un cycle d’abondance et de jeûne. Dans les régions de glace saisonnière, où la banquise disparaît en été, l’ours jeûne plusieurs mois en vivant de ses réserves, et les femelles gravides jeûnent plus longtemps encore, de quatre à huit mois, pour assurer la gestation et la lactation précoce. Un adulte a besoin d’environ 12 000 kilocalories par jour en moyenne selon les estimations, ce qui équivaut à un phoque annelé de taille moyenne tous les quatre à six jours environ. Lorsqu’une chasse réussit, l’ours peut ingérer plusieurs dizaines de kilogrammes de graisse en une seule prise et reconstituer rapidement ses réserves. La durée de la saison de jeûne, qui s’allonge avec le recul de la glace, devient ainsi déterminant pour la survie et de la reproduction.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)REPRODUCTION
L’ours polaire est solitaire hors de la période de reproduction, et l’accouplement a lieu de mars à mai, principalement sur la banquise, au moment où les ours sont concentrés sur la glace pour chasser. Les mâles suivent les traces des femelles en oestrus, parfois sur des dizaines de kilomètres, et gardent leur partenaire pendant plusieurs jours. Les combats peuvent laisser des cicatrices profondes mais restent souvent ritualisés. L’ovulation est induite par l’accouplement, ce qui augmente la probabilité de fécondation, et un couple peut s’accoupler à de multiples reprises pendant la période de garde.
Comme chez les autres ours, l’implantation de l’embryon est différée, l’ovule fécondé se développant jusqu’au stade de blastocyste, puis reste en suspens pendant plusieurs mois. L’implantation survient à l’automne, seulement si la femelle a accumulé des réserves suffisantes, ce qui fait de l’état nutritionnel un régulateur majeur de la reproduction. La gestation effective ne dure alors que deux mois environ. La femelle gravide gagne une tanière entre octobre et novembre selon les régions, et y met bas entre novembre et janvier, le plus souvent un ou deux petits, rarement trois.
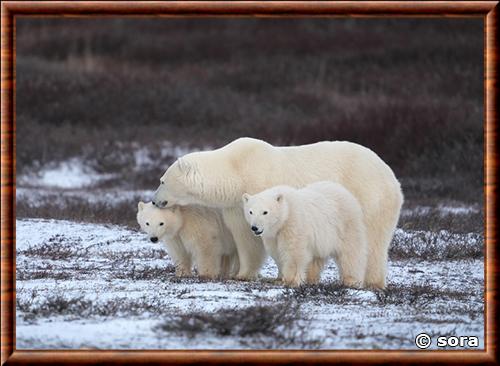
Les tanières sont creusées dans des congères, sur des pentes à l’abri du vent, au bord de côtes, de collines ou de berges, ou parfois dans la glace dérivante en mer de Beaufort. La femelle y demeure plusieurs mois en état de torpeur partielle, sans s’alimenter ni boire, avec une température corporelle proche de la normale. Les nouveau-nés, aveugles et couverts d’un fin duvet, pèsent environ 600 grammes et se développent grâce à un lait exceptionnellement riche, dont la teneur en matières grasses dépasse 30 % et peut atteindre 35 à 40 %. À leur sortie de la tanière, entre mars et avril, ils pèsent de 10 à 15 kilogrammes. La mère reste à proximité de l’abri quelques jours à quelques semaines pour acclimater les petits, puis ils reprennent ensemble la route vers la glace.
Les oursons restent avec leur mère en général deux ans et demi, sevrés au printemps de leur deuxième année ou, plus rarement, à un an et demi ou à trois ans. Cette longue dépendance explique un intervalle entre portées ordinairement de trois ans, l’un des plus longs chez les mammifères terrestres. Les femelles atteignent la maturité sexuelle vers quatre à cinq ans, les mâles vers six ans, bien qu’ils ne se reproduisent souvent qu’à partir de huit à dix ans. La survie des petits de l’année est faible lors des années de mauvaises conditions de glace, en raison de l’infanticide, de la sous-nutrition de la mère, de la noyade ou de l’abandon. La combinaison d’une maturité tardive, d’une portée réduite et d’un intervalle long donne à l’espèce un faible taux de croissance et une grande vulnérabilité à toute mortalité additionnelle.
© Sora - iNaturalist
CC-BY-NC (Certains droits réservés)COMPORTEMENT
L’ours polaire est un animal solitaire, sans territoire défendu au sens strict. Les rencontres entre adultes sont généralement brèves et tolérantes, sauf entre mâles en période d’accouplement ou lorsque la nourriture est en jeu. Contrairement à d’autres ours, il n’hiberne pas. Les mâles comme les femelles non gravides restent actifs toute l’année, et ne s’abritent que quelques jours dans une cavité pour échapper aux tempêtes. L’activité est irrégulière, rythmée par la chasse et le repos plutôt que par l’alternance du jour et de la nuit, laquelle perd son sens pendant la nuit polaire et le jour permanent de l’été.
Les déplacements sont considérables. La marche, à une allure d’environ 5,5 kilomètres par heure, est économique, mais le coût énergétique de la locomotion est élevé comparé à celui d’autres mammifères de même taille, en raison de la masse de l’animal et de l’irrégularité de la glace. L’ours polaire est aussi un nageur puissant, qui propulse son corps avec ses pattes avant et parcourt de longues distances dans une eau très froide. La dérive de la banquise impose aux ours de marcher à contre-courant pour rester dans leur secteur dépensant donc davantage d’énergie dans les régions de glace très mobile.
Les interactions sociales prennent des formes variées. Les jeunes mâles pratiquent régulièrement des jeux de combat, qui servent d’entraînement et s’accompagnent de signaux d’apaisement. En été, sur terre, par exemple dans l’ouest de la baie d’Hudson, des mâles se regroupent en nombre en attendant le retour de la glace, sans agressivité marquée. Autour des carcasses de baleine, des concentrations de dizaines d’ours peuvent se former, la hiérarchie fondée sur la taille et le sexe réglant l’accès à la nourriture. La compétition peut néanmoins tourner à la violence : des mâles adultes tuent et parfois consomment des oursons, des jeunes et plus rarement des adultes, un comportement documenté en Alaska, au Canada et au Svalbard et qui semble plus fréquent en période de pénurie.
La communication repose sur les postures, les marquages olfactifs laissés par les pistes et les empreintes plantaires, et sur un répertoire vocal comprenant souffles, grondements, claquements de mâchoires et, chez les oursons, ronronnements et cris aigus de détresse. La mère est très protectrice et peut affronter des mâles beaucoup plus grands pour défendre ses petits. Si l’ours polaire évite en général l’être humain, il peut l’attaquer ou s’approcher des campements et des villages à la recherche de nourriture, surtout lorsque la glace est absente et que les animaux sont affamés, ce qui multiplie les conflits dans plusieurs régions de l’Arctique.
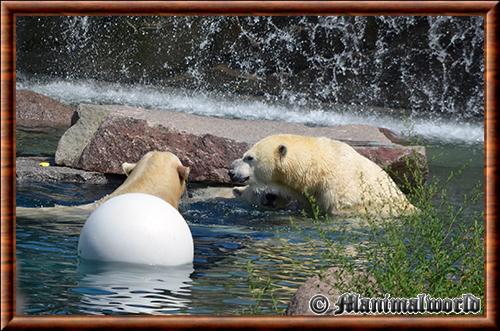
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)PRÉDATION
Au sommet de la chaîne alimentaire marine arctique, l’ours polaire adulte n’a pas de prédateur naturel régulier. Sa taille, sa puissance et la rareté des grands carnivores capables de l’affronter sur la glace le placent hors de portée de la plupart des espèces qui l’entourent. Les causes naturelles de mortalité qui l’affectent relèvent donc davantage de la compétition au sein de l’espèce, de la sous-alimentation, des accidents et des maladies que d’une prédation externe.
Le principal prédateur naturel de l’ours polaire est l’ours polaire lui-même. L’infanticide par des mâles adultes est documenté dans plusieurs régions, notamment au Svalbard, en mer de Beaufort et dans l’ouest de la baie d’Hudson. Il concerne surtout des oursons de l’année, parfois des jeunes plus âgés, et peut aboutir à la consommation de la victime. Deux hypothèses sont discutées : une recherche de nourriture en période de pénurie et, pour les mâles, l’élimination de descendants d’autres mâles, qui avance le retour en oestrus de la mère, une logique connue chez de nombreux carnivores, mais difficile à démontrer chez l’ours polaire. Les femelles accompagnées de petits évitent souvent les mâles et les zones de forte densité, ce qui peut les éloigner de bons terrains de chasse. Le cannibalisme sur des adultes affaiblis ou des animaux déjà morts est également rapporté, plus fréquent les années où la glace manque.
D’autres espèces peuvent occasionnellement menacer des ours, surtout des jeunes. Le morse, armé de défenses redoutables, est parfois à l’origine de blessures graves, voire mortelles, lorsqu’un ours attaque un groupe sur la glace ou sur une plage. Le loup arctique, qui partage certaines îles avec l’ours polaire, pourrait s’en prendre à des oursons isolés, mais aucun cas bien établi de prédation ne sert de référence. À la limite méridionale de l’aire, l’ours brun, dont la distribution progresse vers le nord, rencontre l’ours polaire : les interactions agonistiques, rares, peuvent être mortelles pour l’un ou l’autre. Les épaulards, plus présents dans l’Arctique avec le recul de la glace estivale, pourraient représenter un risque pour des ours en nage, mais les observations restent anecdotiques.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)MENACES
La menace principale pesant sur l'ours polaire est la perte de glace liée au réchauffement climatique. Depuis le début des mesures satellitaires, à la fin des années 1970, l’étendue minimale de la banquise arctique en septembre a diminué de plus de 12 % par décennie, et l’épaisseur comme l’âge de la glace ont également reculé. Pour un animal qui chasse les phoques depuis la surface de la glace, ce recul réduit la superficie de l’habitat de chasse, fragmente la banquise et l’éloigne des plateaux continentaux productifs. Dans les régions de glace saisonnière, la débâcle plus précoce et la prise en glace plus tardive allongent la période de jeûne estival ou automnal.
Les conséquences démographiques sont documentées dans plusieurs sous-populations. Dans l’ouest de la baie d’Hudson, la débâcle survient environ trois semaines plus tôt qu’au début des années 1980, la condition corporelle des ours a diminué, et la population est passée d’environ 1 185 individus en 1987 à environ 800 en 2011. En mer de Beaufort méridionale, la survie a chuté pendant les années de glace défavorable, et l’abondance a baissé d’environ 1 500 à environ 900 ours entre 2001 et 2010. À l’inverse, dans la mer de Beaufort septentrionale, dans certaines régions de l’archipel canadien et au Svalbard, des populations semblent avoir mieux résisté, ce qui confirme que les effets dépendent de la région, de la durée de la saison sans glace et de la disponibilité des proies. Des modèles fondés sur la durée du jeûne suggèrent toutefois que le seuil de persistance pourrait être franchi pour de nombreuses sous-populations avant la fin du siècle sous des scénarios d’émissions élevées.
Les contaminants constituent une seconde menace, plus discrète. Les polluants organiques persistants, dont les polychlorobiphényles, les pesticides organochlorés et les retardateurs de flamme, ainsi que le mercure, sont transportés vers l’Arctique par l’atmosphère et les courants, puis amplifiés tout au long de la chaîne alimentaire marine, l’ours polaire se trouvant à son extrémité. Les concentrations mesurées dans la graisse et le sang de certaines populations, notamment dans l’est du Groenland et au Svalbard, figurent parmi les plus élevées observées chez des mammifères sauvages, et des corrélations avec des perturbations hormonales, immunitaires et osseuses sont rapportées, sans que le poids exact de chaque effet sur les effectifs puisse être établi.
D’autres pressions s’y ajoutent. La chasse, aujourd’hui encadrée par des quotas, demeure une cause de mortalité significative dans certaines sous-populations, et la chasse illégale persiste localement, notamment en Russie. L’exploitation pétrolière et gazière, la navigation maritime en expansion dans un Arctique libéré de ses glaces et l’activité touristique augmentent les risques de dérangement des tanières, de collisions et de déversements d’hydrocarbures, d’autant que la fourrure souillée perd son pouvoir isolant. Enfin, la présence accrue d’ours affamés près des habitations multiplie les conflits avec les humains, bien que les attaques restent rares mais en augmentation, et se terminent souvent par l’abattage de l’animal.
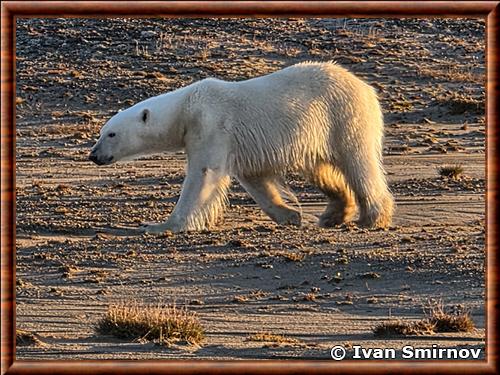
© Ivan Smirnov - iNaturalist
CC-BY-NC (Certains droits réservés)CONSERVATION
Le statut juridique de l’ours polaire repose sur un édifice international. L’Accord sur la conservation des ours polaires, signé à Oslo en 1973 par les cinq États de l’aire de répartition et entré en vigueur en 1976, interdit la chasse commerciale et la chasse non encadrée, protège les zones de tanières et reconnaît le droit de chasse des populations autochtones à des fins traditionnelles. L’espèce figure à l’Annexe II de la CITES, qui réglemente le commerce international des peaux et d’autres produits. Aux États-Unis, la loi de 1972 sur la protection des mammifères marins interdit la chasse hors communautés autochtones, et l’espèce a été classée "menacée" au titre de la loi sur les espèces en danger en 2008. Au Canada, elle est évaluée "préoccupante" par le COSEWIC et gérée en cogestion avec les peuples autochtones.
Au niveau mondial, l’IUCN classe l’espèce "Vulnérable" (VU) sur sa Liste rouge depuis 2006, un statut confirmé en 2015.
La gestion repose sur la cogestion avec les communautés autochtones, sur la surveillance des sous-populations par marquage, suivi satellitaire, inventaires aériens et analyses génétiques, ainsi que sur des quotas de prélèvement fondés sur les estimations d’abondance. Au Canada, les quotas sont négociés avec les organisations inuites; la Russie interdit la chasse depuis 1956 et la Norvège protège l’espèce; en Alaska, un accord bilatéral conclu en 2000 entre les États-Unis et la Fédération de Russie encadre la population d’Alaska et de Tchoukotka. En 2015, les cinq États de l’aire de répartition ont adopté un plan d’action circumpolaire qui fixe des priorités communes, parmi lesquelles la réponse au changement climatique, la réduction des conflits avec les humains et la gestion durable des prélèvements.
Les mesures de conservation de l’habitat sont plus difficiles à mettre en oeuvre, car la menace principale échappe à la gestion locale. Les modèles indiquent qu’une réduction rapide des émissions de gaz à effet de serre pourrait ralentir la perte de glace et préserver davantage de sous-populations, tandis qu’une trajectoire d’émissions élevées en ferait disparaître la majorité d’ici la fin du siècle. À court terme, la gestion cherche à réduire les autres pressions : protection des tanières, encadrement de l’industrie, programmes de prévention des conflits (patrouilles, stockage sécurisé des déchets, répulsifs) et maintien d’une chasse durable. Les mesures d’urgence comme l’alimentation d’appoint ou la translocation sont jugées peu réalistes à grande échelle. Parmi les avancées récentes figure la caractérisation d’une vingtième sous-population dans le sud-est du Groenland, génétiquement isolée et capable d’utiliser la glace issue des glaciers, qui illustre à la fois les lacunes de connaissance et la possibilité de refuges locaux.
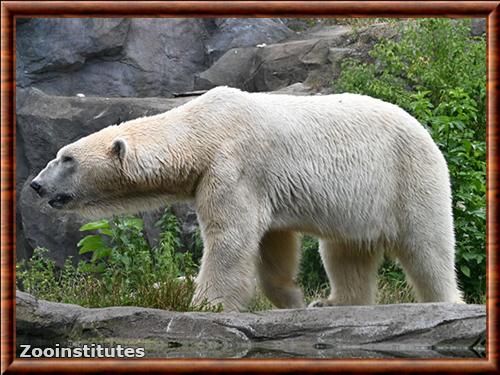
Crédit photo: Alex Kantorovich - Zooinstitutes
HYBRIDATION
L'hybridation chez l'ours polaire implique principalement son voisin taxonomique le plus proche, l'ours brun (Ursus arctos). En raison de leur séparation évolutive récente, les deux espèces conservent une compatibilité génétique significative, permettant la naissance d'hybrides viables et fertiles. Ce phénomène est documenté aussi bien en captivité qu'à l'état sauvage.
En captivité, des croisements ont été réalisés dans plusieurs parcs zoologiques dès le XIXe et le XXe siècle, donnant naissance à des individus montrant des traits physiques intermédiaires, tels qu'une fourrure blanchâtre à jaunâtre, des griffes de longueur moyenne et une tête légèrement bosselée. Ces spécimens captifs ont prouvé que les hybrides de première et de deuxième génération demeuraient fertiles.
À l'état sauvage, des cas d'hybridation naturelle ont été confirmés par des analyses d'ADN à partir des années 2000, notamment dans l'Arctique canadien. Ces évènements surviennent lorsque le retrait précoce de la banquise pousse les ours polaires sur la terre ferme prématurément, tandis que le réchauffement permet aux ours bruns de remonter plus au nord. L'introgression génétique historique montre par ailleurs que ces échanges de gènes entre les deux espèces se sont déjà produits à plusieurs reprises durant les périodes interglaciaires du Pléistocène.
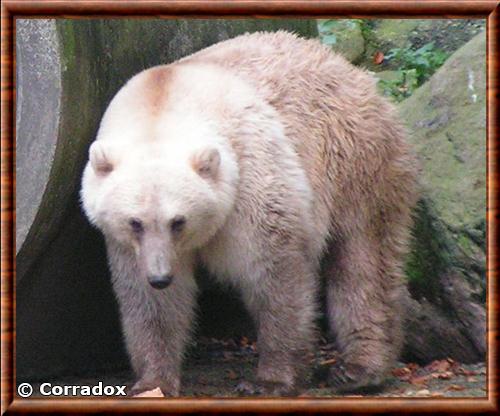
un grizzly et un ours polaire
© Corradox - Wikimedia Commons
 CC-BY-SA (Certains droits réservés)
TAXONOMIE
Les premiers récits européens d’"ours blancs" remontent aux expéditions arctiques de la Renaissance, notamment celle de Willem Barentsz au Svalbard en 1596, qui rapporta la capture d’un de ces animaux. Linné, dans la dixième édition du Systema Naturae (1758), ne reconnaissait pas l’ours polaire comme espèce distincte et le rattachait aux ours bruns, Ursus arctos. C’est le britannique Constantine John Phipps qui, lors de son voyage vers le pôle Nord en 1773, décrivit l’animal comme espèce à part entière et lui donna son nom actuel, Ursus maritimus, dans la relation de l’expédition publiée en 1774. L’épithète, du latin maritimus, "marin", souligne le lien étroit de l’animal avec la mer.
Au XIXe siècle, la morphologie particulière de l’ours polaire (crâne allongé, dentition, pelage) conduit John Edward Gray à créer en 1825 un genre propre, Thalassarctos, souvent orthographié Thalarctos. Pendant plus d’un siècle, de nombreux mammalogistes ont donc écrit Thalarctos maritimus, tandis que d’autres conservaient Ursus. Le paléontologue finlandais Björn Kurtén a contribué à faire prévaloir la seconde option : en réexaminant les fossiles pléistocènes, il a défendu en 1964 l’idée d’une espèce étroitement apparentée à l’ours brun et d’apparition récente, ce qui rendait un genre séparé injustifié. Cette position est aujourd’hui très largement admise, et le nom retenu est Ursus maritimus, au sein du genre Ursus qui comprend aussi l’ours brun, l’ours noir américain et l’ours noir d’Asie.
L’ours polaire est aujourd’hui considéré comme une espèce monotypique, aucune sous-espèce n’étant reconnue par les références taxonomiques usuelles. Plusieurs formes ont pourtant été décrites par le passé, comme Ursus marinus Pallas, 1776, ou diverses sous-espèces nommées par Knottnerus-Meyer en 1908 à partir de populations de régions comme le Groenland, le Labrador, l’Ungava ou le Svalbard, auxquelles s’ajoutent d’autres variétés géographiques fondées sur de petites différences de taille ou de crâne. Ces distinctions n’ont pas résisté à l’analyse. La variation morphologique est largement continue et reflète davantage les conditions de croissance qu’une divergence génétique profonde.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)CLASSIFICATION
| Nom commun | Ours polaire |
| Autre nom | Ours blanc |
| English name | Polar bear |
| Español nombre | Oso polar Oso blanco |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Caniformia |
| Famille | Ursidae |
| Sous-famille | Ursinae |
| Genre | Ursus |
| Nom binominal | Ursus maritimus |
| Décrit par | Constantine John Phipps |
| Date | 1774 |
Satut IUCN |  |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Phipps, C. J. (1774). A Voyage Towards the North Pole Undertaken by His Majesty’s Command, 1773. London: W. Bowyer and J. Nichols.
Amstrup, S. C. (2003). Polar Bear, Ursus maritimus. Wild Mammals of North America: Biology, Management, and Conservation, Johns Hopkins University Press, pp. 587-610.
Derocher, A.E., Andersen, M. et Wiig, Ø. (2005). Sexual dimorphism of polar bears. Journal of Mammalogy, 86(5), 895–901.
Derocher, A.E. et Wiig, Ø. (2002). Postnatal growth in body length and mass of polar bears (Ursus maritimus) at Svalbard. Journal of Zoology, 256, 343–349.
Øritsland, N.A. (1970). Temperature regulation of the polar bear (Thalarctos maritimus). Comparative Biochemistry and Physiology, 37, 225–233.
Pagano, A.M., Durner, G.M., Rode, K.D. et al. (2018). High-energy, high-fat lifestyle challenges an Arctic apex predator, the polar bear. Science, 359, 568–572.
Amstrup, S.C., Durner, G.M., Stirling, I., Lunn, N.J. et Messier, F. (2000). Movements and distribution of polar bears in the Beaufort Sea. Canadian Journal of Zoology, 78, 948–966.
Ferguson, S.H., Taylor, M.K. et Messier, F. (2000). Influence of sea ice dynamics on habitat selection by polar bears. Ecology, 81, 761–772.
Durner, G.M., Douglas, D.C., Nielson, R.M. et al. (2009). Predicting 21st-century polar bear habitat distribution from global climate models. Ecological Monographs, 79, 25–58.
Peacock, E., Sonsthagen, S.A., Obbard, M.E. et al. (2015). Implications of the circumpolar genetic structure of polar bears for their conservation in a rapidly warming Arctic. PLoS ONE, 10(1), e0112021.
Peacock, E., Sonsthagen, S.A., Obbard, M.E. et al. (2015). Implications of the circumpolar genetic structure of polar bears for their conservation in a rapidly warming Arctic. PLoS ONE, 10(1), e0112021.
Smith, T.G. (1980). Polar bear predation of ringed and bearded seals in the land-fast sea ice habitat. Canadian Journal of Zoology, 58, 2201–2209.
Thiemann, G.W., Iverson, S.J. et Stirling, I. (2008). Polar bear diets and Arctic marine food webs: insights from fatty acid analysis. Ecological Monographs, 78, 591–613.
Derocher, A.E., Wiig, Ø. et Andersen, M. (2002). Diet composition of polar bears in Svalbard and the western Barents Sea. Polar Biology, 25, 448–452.
Derocher, A.E., Wiig, Ø. et Bangjord, G. (2000). Predation of Svalbard reindeer by polar bears. Polar Biology, 23, 675–678.
Gormezano, L.J. et Rockwell, R.F. (2013). What to eat now? Shifts in polar bear diet during the ice-free season in western Hudson Bay. Ecology and Evolution, 3, 3509–3523.
Ramsay, M.A. et Stirling, I. (1988). Reproductive biology and ecology of female polar bears (Ursus maritimus). Journal of Zoology, 214, 601–634.
Atkinson, S.N. et Ramsay, M.A. (1995). The effects of prolonged fasting of the body composition and reproductive success of female polar bears (Ursus maritimus). Functional Ecology, 9, 559–567.
Derocher, A.E., Andriashek, D. et Arnould, J.P.Y. (1993). Aspects of milk composition and lactation in polar bears. Canadian Journal of Zoology, 71, 561–567.
Messier, F., Taylor, M.K. et Ramsay, M.A. (1994). Denning ecology of polar bears in the Canadian Arctic Archipelago. Journal of Mammalogy, 75, 420–430.
Stirling, I. (1974). Midsummer observations on the behavior of wild polar bears (Ursus maritimus). Canadian Journal of Zoology, 52, 1191–1198.
Mauritzen, M., Derocher, A.E. et Wiig, Ø. (2001). Space-use strategies of female polar bears in a dynamic sea ice habitat. Canadian Journal of Zoology, 79, 1704–1713.
Derocher, A.E. et Stirling, I. (1990). Observations of aggregating behaviour in adult male polar bears (Ursus maritimus). Canadian Journal of Zoology, 68, 1390–1394.
Taylor, M., Larsen, T. et Schweinsburg, R.E. (1985). Observations of intraspecific aggression and cannibalism in polar bears (Ursus maritimus). Arctic, 38, 303–309.
Amstrup, S.C., Stirling, I., Smith, T.S., Perham, C. et Thiemann, G.W. (2006). Recent observations of intraspecific predation and cannibalism among polar bears in the southern Beaufort Sea. Polar Biology, 29, 997–1002.
Stirling, I. et Derocher, A.E. (2012). Effects of climate warming on polar bears: a review of the evidence. Global Change Biology, 18, 2694–2706.
Regehr, E.V., Lunn, N.J., Amstrup, S.C. et Stirling, I. (2007). Effects of earlier sea ice breakup on survival and population size of polar bears in western Hudson Bay. Journal of Wildlife Management, 71, 2673–2683.
Lunn, N.J., Servanty, S., Regehr, E.V. et al. (2016). Demography of an apex predator at the edge of its range: impacts of changing sea ice on polar bears in Hudson Bay. Ecological Applications, 26, 1302–1320.
Rode, K.D., Amstrup, S.C. et Regehr, E.V. (2010). Reduced body size and cub recruitment in polar bears associated with sea ice decline. Ecological Applications, 20, 768–782.
COSEWIC (2019). Polar Bear Ursus maritimus. Committee on the Status of Endangered Wildlife in Canada.
Regehr, E.V., Laidre, K.L., Akçakaya, H.R. et al. (2016). Conservation status of polar bears (Ursus maritimus) in relation to projected sea-ice declines. Biology Letters, 12, 20160556.
Laidre, K.L., Atkinson, S., Regehr, E.V. et al. (2018). Range contraction and increasing isolation of a polar bear subpopulation in an era of sea-ice loss. Ecology and Evolution, 8, 2062–2075.
Amstrup, S.C., DeWeaver, E.T., Douglas, D.C. et al. (2010). Greenhouse gas mitigation can reduce sea-ice loss and increase polar bear persistence. Nature, 468, 955–958.
Gray, J.E. (1825). Outline of an attempt at the disposition of Mammalia into tribes and families, with a list of the genera apparently appertaining to each tribe. Annals of Philosophy, 10, 337–344.
Miller, W., Schuster, S.C., Welch, A.J. et al. (2012). Polar and brown bear genomes reveal ancient admixture and demographic footprints of past climate change. Proceedings of the National Academy of Sciences, 109, E2382–E2390.
Liu, S., Lorenzen, E.D., Fumagalli, M. et al. (2014). Population genomics reveal recent speciation and rapid evolutionary adaptation in polar bears. Cell, 157, 785–794.
Edwards, C.J., Suchard, M.A., Lemey, P. et al. (2011). Ancient hybridization and an Irish origin for the modern polar bear matriline. Current Biology, 21, 1251–1258.
Doupé, J. P., England, J. H., Furze, M., et Paetkau, D. (2007). Most northerly record of a grizzly bear (Ursus arctos) in Canada: Biogeographic and conservation implications. Arctic, 60(3), 271-274.
Kelly, B. P., Whiteley, A., et Tallmon, D. (2010). The Arctic melting pot. Nature, 468(7326), 891-892.