
Ours brun (Ursus arctos)
L’ours brun (Ursus arctos) représente l'un des mammifères terrestres omnivores les plus emblématiques et les plus vastes par sa répartition géographique historiquement holarctique. Appartenant à la famille des ursidés, ce grand prédateur se distingue par une plasticité écologique remarquable lui permettant de s'adapter à des environnements aussi variés que les forêts de conifères tempérées, les toundras arctiques ou les zones de montagnes escarpées. Malgré une large distribution globale qui lui vaut un statut de préoccupation mineure à l'échelle internationale, de nombreuses populations locales subissent une fragmentation sévère de leur habitat et une pression anthropique constante. Sa biologie complexe, mêlant une période de léthargie hivernale et un taux de reproduction particulièrement bas, en fait un sujet central pour la conservation de la grande faune sauvage et la cohabitation entre l'homme et la nature.
© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
 DESCRIPTION
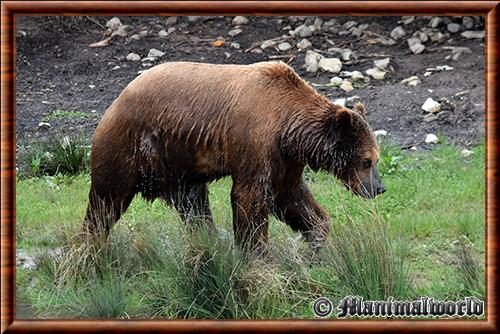
L'ours brun est un animal massif et trapu, plantigrade, dont la taille varie fortement selon les populations, le sexe, la saison et l'abondance des ressources. Les adultes mesurent le plus souvent entre 1,7 et 2,8 mètres de longueur, pour une hauteur au garrot de 90 à 150 centimètres. Le dimorphisme sexuel est marqué : les mâles des populations continentales d'Europe et de Sibérie pèsent couramment de 150 à 350 kilogrammes, tandis que ceux des régions côtières riches en saumons, comme l'Alaska ou l'île de Kodiak, dépassent fréquemment 450 kilogrammes. Quelques individus exceptionnels approchent, voire franchissent, 650 kilogrammes. Les femelles, nettement plus légères, se situent généralement entre 90 et 250 kilogrammes.
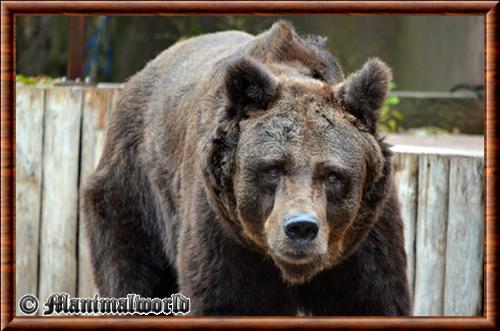
Le trait le plus reconnaissable est la bosse des épaules, formée de muscles puissants qui actionnent les membres antérieurs et facilitent le creusement. La tête est large, au profil frontal plus ou moins concave, avec de petites oreilles rondes et des yeux relativement petits. Les griffes, non rétractiles, mesurent de 5 à 10 centimètres, sont faiblement courbées et conviennent surtout au fouissage, ce qui distingue l'adulte de l'ours noir américain, meilleur grimpeur. La queue se réduit à un moignon de quelques centimètres, dissimulé dans le pelage.
La couleur du pelage est extrêmement variable, du brun presque noir au blond ou au crème, en passant par le roux, le doré et le gris argenté. Chez le grizzly nord-américain, les pointes claires des poils du dos et des épaules donnent l'aspect grisonnant qui a valu son nom à l'animal. L'ours isabelle de l'Himalaya porte une robe sableuse, et l'ours bleu du Tibet se reconnaît à son collier pâle. De nombreux jeunes arborent un collier blanchâtre qui s'estompe avec l'âge. Le pelage d'hiver, épais et doublé d'un sous-poil laineux, est renouvelé par une mue qui s'étend du printemps au début de l'été.
Le crâne, volumineux, porte chez les vieux mâles une crête sagittale bien développée, support d'une puissante musculature masticatrice. Sa longueur condylobasale atteint 25 à 40 centimètres selon les populations. La formule dentaire compte 42 dents. Contrairement à celles des grands félins, les carnassières sont peu spécialisées et les molaires, larges et aplaties, sont adaptées au broyage des végétaux, ce qui reflète le régime omnivore de l'espèce.
L'odorat, d'une finesse remarquable, permet de repérer une charogne à plusieurs kilomètres. L'ouïe est bonne et la vue seulement moyenne. Malgré sa corpulence, l'ours brun peut atteindre 50 km/h sur de courtes distances et nage aisément. La longévité atteint couramment 20 à 30 ans à l'état sauvage et dépasse 40 ans en captivité.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)HABITAT
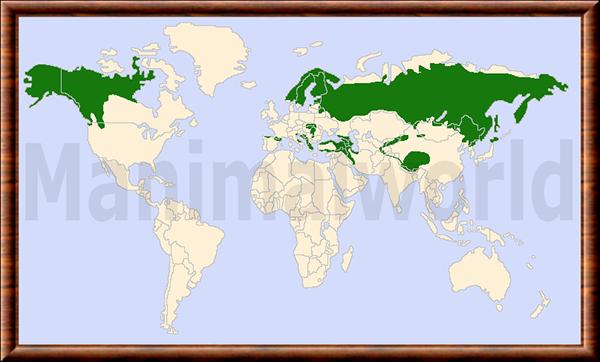
L'ours brun possède l'aire la plus étendue de tous les ursidés. Holarctique, il occupait à l'origine presque toute l'Eurasie tempérée et boréale, de la péninsule Ibérique au Japon, ainsi que les massifs d'Afrique du Nord et la majeure partie de l'Amérique du Nord, de l'Alaska aux plateaux mexicains en passant par les Grandes Plaines. Cette aire s'est fortement fragmentée depuis plusieurs siècles. L'espèce a disparu d'Afrique du Nord, des îles Britanniques, de la plus grande partie de l'Europe occidentale et centrale, du Mexique et du centre des États-Unis. Les effectifs mondiaux sont estimés à environ 200 000 individus, dont près de la moitié en Russie.
En Europe, hors Russie, l'ours brun subsiste dans une dizaine de populations qui totalisent environ 17 000 animaux. La plus importante est celle des Carpates, forte de plusieurs milliers d'individus, surtout en Roumanie, suivie de celles des Balkans, de Scandinavie et de Carélie, cette dernière partagée avec la Russie. D'autres noyaux sont beaucoup plus petits et fragiles : l'ours marsicain des Apennins centraux, qui ne compte que quelques dizaines d'animaux, la population alpine du Trentin issue de réintroductions, les Pyrénées, et la chaîne cantabrique, au nord de l'Espagne, qui rassemble quelque 350 à 400 individus.
La situation française illustre ce déclin puis cette reconstitution partielle. Disparu des Alpes au cours de la première moitié du XXe siècle, l'ours brun ne subsistait plus dans les Pyrénées, au milieu des années 1990, que sous la forme d'un noyau relique de quelques individus. Les lâchers de trois ours slovènes en 1996 et 1997, de cinq autres en 2006, puis de deux femelles en Béarn en 2018 ont permis à la population de dépasser aujourd'hui quatre-vingts individus, concentrés surtout dans les Pyrénées centrales de part et d'autre de la frontière franco-espagnole.
En Asie, l'espèce occupe encore le Caucase, l'Anatolie orientale, l'Iran, les montagnes d'Asie centrale, l'Himalaya, le plateau tibétain, l'Altaï, la Sibérie, l'Extrême-Orient russe, Sakhaline et Hokkaido. La petite population du désert de Gobi, en Mongolie, ne compte que quelques dizaines d'individus. En Amérique du Nord, l'ours brun reste abondant en Alaska et dans le nord-ouest du Canada, avec respectivement environ 30 000 et 25 000 animaux. Dans les États contigus des États-Unis, il ne survit plus que dans quelques noyaux montagneux, dont le Grand écosystème de Yellowstone, pour environ 2 000 individus.
L'espèce fait preuve d'une grande plasticité écologique. Elle fréquente la taïga, les forêts de feuillus, les prairies alpines, la toundra, les rivières à saumons, les steppes et les déserts, du niveau de la mer à plus de 5 000 mètres dans l'Himalaya. Elle exige surtout un couvert suffisant, des sites de tanière tranquilles et des ressources saisonnières variées, et elle évite les zones très fréquentées par l'homme. Les domaines vitaux vont de quelques dizaines à quelques centaines de kilomètres carrés chez les femelles. Ils sont beaucoup plus vastes chez les mâles, qui se dispersent loin, tandis que les jeunes femelles restent près du territoire maternel, ce qui ralentit la recolonisation.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)ALIMENTATION
L'ours brun est un omnivore opportuniste dont le régime varie fortement selon les régions et les saisons. Dans la plupart des populations eurasiatiques et continentales, les végétaux représentent la plus grande part de l'énergie ingérée, souvent de 70 à 90 % de la biomasse consommée. L'alimentation comprend des herbacées au printemps, de nombreuses baies (myrtilles, airelles, framboises), des fruits sauvages, des glands, des faînes, des noisettes, des graines de pins comme le pin cembro ou le pin à écorce blanche, ainsi que des racines et des bulbes déterrés grâce aux griffes.
La part animale est très variable. Les invertébrés, surtout les fourmis, les guêpes et leurs larves, apportent un complément constant. Dans le Grand Yellowstone, les papillons de nuit rassemblés en altitude en été constituent une ressource concentrée très recherchée. Les vertébrés sont consommés sous forme de charognes, de rongeurs fouis (marmottes, spermophiles) et de jeunes ongulés : cerf, orignal ou de renne, que les femelles capturent surtout au début de l'été. Les ours adultes chassent des ongulés adultes plus rarement, selon la région et la compétence de l'individu.
Sur la façade pacifique de l'Amérique du Nord et au Kamtchatka, les remontées de saumons offrent une ressource d'une richesse exceptionnelle. Les ours côtiers qui y ont accès atteignent des masses corporelles bien supérieures à celles des ours continentaux. Ils abandonnent une partie des carcasses, ce qui transfère de l'azote marin vers les forêts riveraines et participe à la fertilisation des écosystèmes terrestres.
Le cycle annuel de l'alimentation est dicté par la nécessité de constituer des réserves avant l'hivernage. À la sortie de la tanière, au printemps, l'ours brun consomme surtout des cadavres d'ongulés morts pendant l'hiver et les premières pousses vertes. En été il passe à des fruits précoces, aux insectes et aux proies juvéniles. À l'automne il traverse une phase d'hyperphagie qui peut lui faire ingérer jusqu'à 20 000 kilocalories par jour, et il accumule des graisses qui représentent une part importante de sa masse corporelle. Les travaux sur l'écologie nutritionnelle montrent que l'espèce maximise le gain de masse en ajustant ses proportions de protéines, de lipides et de glucides plutôt que sa seule ingestion énergétique.
Cette flexibilité explique aussi les conflits avec l'homme. Les ours peuvent s'attaquer aux troupeaux de moutons, aux ruchers, aux vergers et aux cultures de maïs, et se conditionnent facilement aux déchets et aux nourritures d'origine humaine. À l'inverse, la raréfaction de ressources clés, comme les pins à écorce blanche touchés par la rouille vésiculeuse ou les remontées de saumons affectées par la pêche et le climat, peut modifier le comportement de recherche alimentaire et les risques de rencontres.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)REPRODUCTION
La reproduction est polygame : mâles et femelles s'accouplent avec plusieurs partenaires pendant la saison de reproduction, qui s'étend de mai à juillet. Les femelles, à ovulation induite, restent réceptives plusieurs semaines et peuvent produire des portées de paternité multiple. Les couples ne restent ensemble que quelques jours à quelques semaines, et les mâles ne participent en rien à l'éducation des jeunes.
La reproduction de l'espèce se caractérise par une implantation différée. Après la fécondation, le blastocyste reste libre dans l'utérus pendant plusieurs mois et ne s'implante qu'à la fin de l'automne, vers novembre, si la femelle a accumulé des réserves suffisantes. La gestation proprement dite ne dure alors qu'environ six à huit semaines. Ce mécanisme permet à l'organisme maternel de n'engager l'effort de gestation et de lactation que si les conditions corporelles l'autorisent, faute de quoi l'embryon n'est pas poursuivi.
Les petits naissent entre janvier et mars, dans la tanière, durant le sommeil hivernal de la mère. La portée comprend de un à quatre petits, le plus souvent deux, dont la masse à la naissance est de l'ordre de 350 à 600 grammes. Ils sont nus ou presque, aveugles et totalement dépendants. Le lait est extrêmement riche en graisse, ce qui permet une croissance rapide pendant la période passée dans la tanière. Les oursons sortent avec leur mère vers avril ou mai et pèsent alors quelques kilogrammes.
Le sevrage intervient généralement entre un an et demi et deux ans et demi, la durée de dépendance variant selon les populations et la condition de la mère. Pendant ce temps, la femelle n'est pas de nouveau réceptive, ce qui explique des intervalles entre portées de deux à quatre ans. La maturité sexuelle survient entre quatre et dix ans, plus tard dans les populations pauvres en ressources. Le taux de reproduction de l'espèce est parmi les plus faibles des mammifères terrestres, ce qui limite sa capacité de récupération après des pertes.
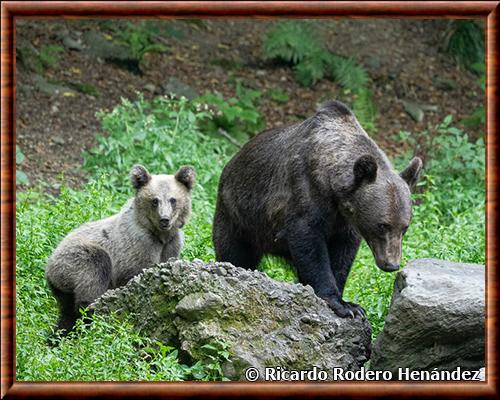
La mortalité des oursons est élevée, de l'ordre de 20 à 40 % durant la première année selon les populations. L'infanticide commis par des mâles adultes en est une cause importante : en éliminant des petits qui ne sont pas les leurs, un mâle ramène la mère plus vite en oestrus. Ce phénomène, étudié en Suède, est amplifié par la chasse sélective des mâles, qui perturbe la structure sociale. Les femelles ont développé des stratégies de défense, comme l'évitement des mâles, l'accouplement avec plusieurs partenaires ou le choix de zones refuges.
© Ricardo Rodero Henández - iNaturalist
 CC-BY-NC (Certains droits réservés)
COMPORTEMENT
L'ours brun est un animal essentiellement solitaire. Les seules associations durables unissent une femelle à ses petits, parfois aussi des jeunes frères et soeurs après leur séparation de la mère. Les mâles et les femelles se rencontrent brièvement pendant la saison d'accouplement. Des agrégations temporaires se forment toutefois là où la nourriture est concentrée, notamment autour des rivières à saumons ou des décharges, avec des hiérarchies de dominance fondées sur la taille et l'âge qui limitent l'intensité des conflits.
Le rythme d'activité est en principe crépusculaire et diurne, mais dans les zones fréquentées par l'homme l'ours devient surtout nocturne, comme l'ont montré les suivis télémétriques en Scandinavie. Il module ses déplacements et l'usage de l'espace selon les risques perçus, en évitant les routes, les habitations et les périodes de chasse. L'espèce montre de fortes capacités d'apprentissage, des différences individuelles de tempérament et une mémoire spatiale détaillée de la distribution des ressources.
La communication repose surtout sur des signaux chimiques et visuels. Les ours frottent leur dos contre des arbres, les griffent et les mordent, piétinent des sentiers en y marquant leurs pas, et déposent ainsi des informations sur l'identité, le sexe et la dominance de l'individu. Les vocalisations, grondements, souffles et claquements de mâchoires, servent surtout lors de rencontres proches. La majorité des attaques sur l'homme sont défensives, dues à une rencontre inopinée à courte distance, à la défense de petits ou à celle d'une carcasse.
L'hivernage constitue le trait comportemental le plus remarquable. L'ours brun entre en tanière d'octobre à décembre, selon la latitude, la condition corporelle et la disponibilité alimentaire. Il y reste de trois à sept mois, dans une cavité creusée dans un versant, sous des racines ou dans une grotte. Pendant cette période, il ne mange, ne boit, n'urine et ne défèque pas. Son métabolisme est réduit de façon importante et sa température corporelle baisse de quelques degrés seulement, ce qui permet un réveil rapide en cas de dérangement. Contrairement aux véritables hibernants, l'ours brun conserve sa masse musculaire et osseuse de façon remarquable.
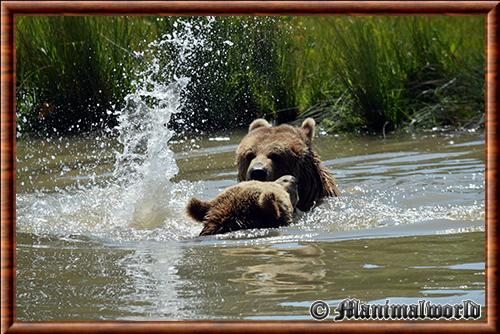
Les déplacements saisonniers suivent la disponibilité des ressources, avec des mouvements altitudinaux ou des migrations vers les rivières à saumons. Les jeunes mâles se dispersent à de grandes distances, parfois plusieurs dizaines ou centaines de kilomètres, tandis que les jeunes femelles restent près du territoire maternel. Cette dispersion sexuée influence la dynamique génétique et la vitesse de recolonisation des zones vacantes.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)PRÉDATION
L'ours brun adulte occupe le sommet de la chaîne alimentaire et n'a pratiquement aucun prédateur naturel. Cette position se traduit par une mortalité d'origine non humaine faible chez les adultes, causée surtout par des combats entre mâles, la malnutrition, les avalanches, les chutes, les maladies et la sénescence. L'homme demeure de très loin le principal facteur de mortalité, par la chasse, le braconnage, la destruction des animaux problématiques et les collisions routières.
Les jeunes sont beaucoup plus vulnérables. Le premier danger vient de l'espèce elle-même : les mâles adultes tuent parfois des oursons, et plus rarement des subadultes, pour des raisons de sélection sexuelle, et le cannibalisme alimentaire reste plus occasionnel. Les mères réagissent avec une grande agressivité, ce qui rend ces attaques risquées pour les mâles eux-mêmes. Les petits, privés de leur mère ou perdus, meurent aussi de faim ou de froid, et la mortalité du premier hiver peut être élevée.
Parmi les autres carnivores, le loup est le plus susceptible d'interagir avec l'ours. Les rencontres se produisent surtout autour des carcasses : un ours dominant chasse généralement des loups de leur proie, mais une meute nombreuse peut parfois menacer un individu isolé, un jeune ou une femelle accompagnée de petits. Les observations menées dans le Grand Yellowstone montrent que ces conflits restent le plus souvent résolus sans issue fatale pour l'ours, et qu'il profite plutôt des proies tuées par les loups. Des événements de prédation lupine sur oursons ou subadultes ont toutefois été signalés.
Dans l'Extrême-Orient russe, le tigre de Sibérie peut tuer des ours bruns, y compris des adultes, notamment lorsqu'ils sortent de leur tanière ou en sont dérangés. Les ours noirs d'Asie en sont des proies plus fréquentes. Ce comportement, marginal à l'échelle de l'espèce, illustre que seul un grand félin d'un poids comparable peut menacer un adulte. En Amérique du Nord, le puma peut parfois s'attaquer à de jeunes oursons.
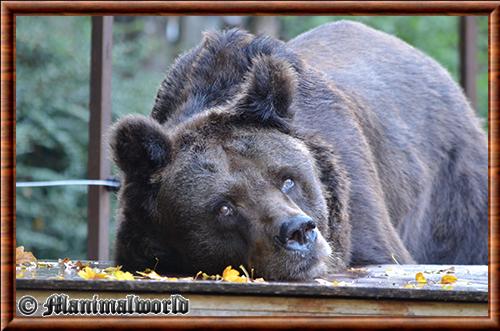
Les agents pathogènes jouent un rôle secondaire. L'ours brun est hôte de plusieurs parasites, dont les trichines (Trichinella), transmises par la consommation de viande, des helminthes intestinaux et des ectoparasites comme les tiques. Les épisodes de maladies infectieuses sont peu documentés et semblent rarement affecter les populations de façon importante. Les effets indirects de l'homme, par la modification de l'habitat, la raréfaction des ressources ou la proximité avec le bétail et les animaux domestiques, constituent un risque plus sérieux.
le 06 janvier 2016
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)MENACES
La principale menace historique et actuelle est la mortalité d'origine humaine. L'ours brun a été persécuté pendant des siècles comme prédateur du bétail et gibier de prestige, ce qui l'a éliminé de la plus grande partie de l'Europe occidentale et centrale, du Mexique et de la Californie. Aujourd'hui encore, la chasse légale, très encadrée dans certains pays comme la Suède ou le Canada, ou plus discutée ailleurs, le braconnage, les tirs de représailles et l'empoisonnement continuent d'affecter les populations. En Asie, le commerce illégal de vésicules biliaires, de pattes et d'autres parties pèse sur plusieurs populations.
La destruction et la fragmentation de l'habitat sont une autre cause majeure de déclin. Les routes, les voies ferrées, les infrastructures hydroélectriques, l'exploitation forestière, minière et pétrolière, l'urbanisation et l'extension des activités touristiques isolent les populations et réduisent leurs échanges. En Amérique du Nord, la fragmentation entre les populations du sud du Canada et celles des États-Unis limite les mouvements d'individus entre écosystèmes. En Europe, les autoroutes constituent des barrières difficilement franchissables entre les noyaux de peuplement.
Les petites populations isolées souffrent de problèmes génétiques. La consanguinité, la perte de diversité génétique et la sensibilité aux événements aléatoires affectent les ours des Pyrénées, des Apennins, de Gobi et de certaines parties des Alpes. Elles s'ajoutent à la lenteur du renouvellement démographique, la faible fécondité de l'espèce ne permettant pas de compenser rapidement les pertes.
Les conflits avec les activités humaines restent un enjeu social majeur. Les attaques sur les troupeaux ovins, les dégâts aux ruchers et aux cultures, les rencontres avec les promeneurs et les accidents provoquent des tensions locales et une opposition à la conservation. Dans les zones à forte fréquentation, la présence d'ours habitués aux nourritures humaines aboutit souvent à leur élimination, ce qui augmente la mortalité d'origine anthropique.
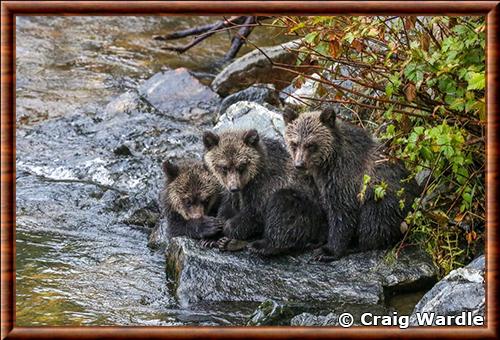
Le changement climatique constitue une menace plus diffuse mais croissante. Le réchauffement modifie la phénologie des ressources, raccourcit ou perturbe la période d'hivernage, réduit certaines ressources clés, comme les pins à écorce blanche touchés par les insectes et les pathogènes, et pourrait affecter les remontées de saumons. Il modifie aussi la répartition altitudinale de l'habitat et accroît la vulnérabilité de certaines populations de montagne. Ces effets, encore mal quantifiés, s'ajoutent à la pression directe de l'homme et sont susceptibles de modifier la répartition future de l'espèce.
© Craig Wardle - iNaturalist
CC-BY-NC (Certains droits réservés)CONSERVATION
À l'échelle mondiale, l'ours brun est classé dans la catégorie "préoccupation mineure" (LC) sur la Liste rouge de l'IUCN, du fait de son aire immense et de ses effectifs importants, notamment en Russie, en Amérique du Nord et dans les Carpates. Ce classement masque de fortes disparités : plusieurs populations isolées, comme celles des Apennins, des Pyrénées, de Gobi, du Caucase méridional ou de certaines montagnes d'Asie, sont classées menacées à l'échelle régionale. L'espèce figure à l'annexe II de la CITES, certaines populations (Bhoutan, Chine, Mexique, Mongolie) étant inscrites à l'annexe I.
En Europe, l'ours brun bénéficie d'une protection stricte au titre de la convention de Berne et de la directive "Habitats-Faune-Flore", qui l'inscrit comme espèce prioritaire à l'annexe II et strictement protégée à l'annexe IV. La coordination à l'échelle du continent est assurée par l'Initiative pour les grands carnivores en Europe, qui produit des lignes directrices de gestion à l'échelle des populations. Les stratégies reposent sur le suivi génétique et télémétrique, l'indemnisation des dégâts, la prévention par les chiens de protection, les clôtures électriques et le gardiennage, ainsi que sur la gestion des déchets.
Les renforcements de population constituent un outil majeur. Dix ours slovènes ont été introduits dans le Trentin entre 1999 et 2002, et les lâchers dans les Pyrénées françaises ont permis d'éviter la disparition de l'espèce dans la chaîne. Ces opérations restent débattues, notamment du fait des conflits avec le pastoralisme, et la population pyrénéenne demeure très dépendante de la consanguinité et de l'acceptation sociale. En Espagne, la population cantabrique s'est accrue grâce à une protection prolongée et à un effort de coexistence.
En Amérique du Nord, le grizzly est protégé par l'Endangered Species Act depuis 1975 dans les États contigus. Le cas de la population de Yellowstone illustre l'enjeu : plusieurs tentatives de retrait de la liste fédérale, en 2007 puis en 2017, ont été annulées par des décisions judiciaires. Au Canada, la population de l'ouest est classée espèce préoccupante, et les populations des Prairies ont disparu. L'Alaska, où l'espèce est chassée dans un cadre régulé, reste le principal bastion.
Les enjeux actuels portent sur la connectivité entre noyaux, la réduction de la mortalité d'origine humaine, la prévention des conflits, la diversité génétique des petites populations et l'adaptation au changement climatique. Pour l'ours marsicain, dont l'effectif ne dépasse pas quelques dizaines d'individus, la situation reste critique malgré les programmes de protection. L'avenir de l'espèce dépend largement de l'acceptation locale, de la gestion coordonnée entre pays et de la préservation de corridors qui permettent à des populations fragmentées de rester viables.
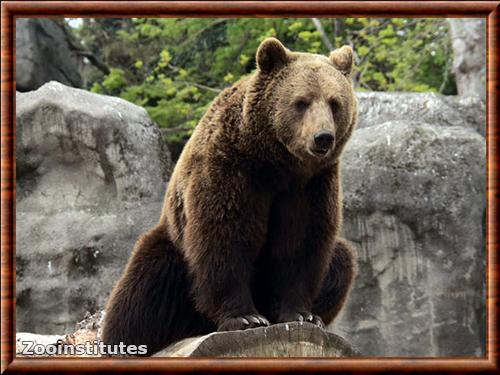
Crédit photo: Alex Kantorovich - Zooinstitutes
TAXONOMIE
L'espèce a été décrite par Carl von Linné en 1758, dans la dixième édition du Systema Naturae, sous le nom d'Ursus arctos, qui associe le mot latin désignant l'ours à son équivalent grec, arktos, lui-même lié à la constellation de la Grande Ourse et au nord. La localité type a ensuite été restreinte à la Suède. Au fil du XIXe siècle, de nombreuses formes ont été décrites à partir de spécimens isolés, souvent sur la base de la coloration, de la taille ou de caractères crâniens. Le grizzly d'Amérique du Nord a été nommé Ursus horribilis par George Ord en 1815, et l'ours isabelle de l'Himalaya, Ursus isabellinus, par Thomas Horsfield en 1826.
Cette tendance a atteint son apogée avec C. Hart Merriam, qui publia en 1918 une révision des grizzlis et grands ours bruns d'Amérique du Nord distinguant plus de quatre-vingts formes, toutes décrites comme des espèces ou des sous-espèces. Cette classification, fondée sur des différences crâniennes souvent minimes entre quelques spécimens, a été remise en cause dès les années 1960. Rausch, en 1963, montra que la variation de taille tenait en grande partie à l'âge, au sexe et aux conditions locales, et ramena l'ensemble à une seule espèce comptant deux sous-espèces nord-américaines. Hall, en 1981, en reconnut finalement six.
En Eurasie, Pocock (1932) puis Ellerman et Morrison-Scott (1951) proposèrent des synthèses qui réduisaient déjà le nombre de formes. Les travaux de Kurtén sur les ours du Quaternaire apportèrent un cadre évolutif. Ursus arctos descend de la lignée de l'ours étrusque (Ursus etruscus), espèce du Pliocène supérieur et du Pléistocène inférieur. Les plus anciens fossiles attribués à l'espèce proviennent de Chine, il y a un demi-million d'années environ, et d'Europe, un peu plus tard. L'ours des cavernes (Ursus spelaeus) appartient à une lignée parallèle qui s'est séparée de celle de l'ours brun il y a plus d'un million d'années.
L'avènement de la génétique moléculaire a profondément renouvelé le sujet. Les travaux de Taberlet et Bouvet (1994) sur l'ADN mitochondrial montrèrent en Europe l'existence de deux grandes lignées, occidentale et orientale, correspondant à des refuges glaciaires distincts, notamment en Ibérie et dans les Balkans, d'où se sont recolonisées l'Europe de l'Ouest et la Scandinavie. L'ADN ancien, notamment les travaux de Barnes et collaborateurs sur la Béringie, éclaira la colonisation de l'Amérique du Nord, qui s'est faite à plusieurs reprises depuis l'Asie au cours des derniers 100 000 ans. Davison et collaborateurs, puis Korsten et collaborateurs, reconstituèrent les scénarios biogéographiques post-glaciaires.
Une conséquence importante de ces études concerne l'ours polaire (Ursus maritimus) décrit par Phipps en 1774. Les analyses génomiques montrent qu'il est issu de la lignée de l'ours brun, qui est donc paraphylétique par rapport à lui, et que des flux géniques ont existé entre les deux espèces, comme l'illustrent les ours des îles ABC en Alaska, dont l'ADN mitochondrial est proche de celui de l'ours polaire.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)SOUS-ESPÈCES
La classification des sous-espèces de l'ours brun est controversée. Mammal Species of the World, troisième édition, reconnaît seize sous-espèces, classification qui reste une référence taxonomique importante pour les noms historiques :
- Ursus arctos alascensis (Ours brun d'Alaska)
- Ursus arctos arctos (Ours brun d'Eurasie, forme nominale)
- Ursus arctos beringianus (Ours brun du Kamtchatka)
- Ursus arctos californicus (Ours brun de Californie †)
- Ursus arctos collaris (Ours brun de Sibérie orientale)
- Ursus arctos crowtheri (Ours brun de l'Atlas †)
- Ursus arctos dalli (Ours brun de l'île de Dall)
- Ursus arctos gyas (Ours brun de la péninsule d'Alaska)
- Ursus arctos horribilis (Grizzly)
- Ursus arctos isabellinus (Ours Isabelle)
- Ursus arctos lasiotus (Ours brun d'Oussouri)
- Ursus arctos middendorffi (Ours Kodiak)
- Ursus arctos pruinosus (Ours bleu du Tibet)
- Ursus arctos sitkensis (Ours brun des îles ABC)
- Ursus arctos stikeenensis (Ours brun Stickeen)
- Ursus arctos syriacus (Ours brun de Syrie)
Cette liste doit toutefois être accompagnée d’une réserve taxonomique importante. Le nombre de sous-espèces actuellement reconnues varie selon les référentiels. Certaines formes, notamment l'Ours de Gobi (Ursus arctos gobiensis), l'ours marsicain (Ursus arctos marsicanus), le grizzly du Mexique (Ursus arctos nelsoni), l'ours des Pyrénées (Ursus arctos pyrenaicus) et plusieurs anciennes formes nord-américaines, ont été reconnues, synonymisées ou réévaluées selon les auteurs. Le Mammal Diversity Database reconnaît aujourd’hui Ursus arctos comme une espèce valide sans reprendre nécessairement la subdivision de Wilson et Reeder en seize sous-espèces. Il est donc préférable, dans une fiche zoologique moderne, de présenter les seize formes de Mammal Species of the World comme une classification de référence historique plutôt que comme une liste universellement acceptée.
GALERIE PHOTO
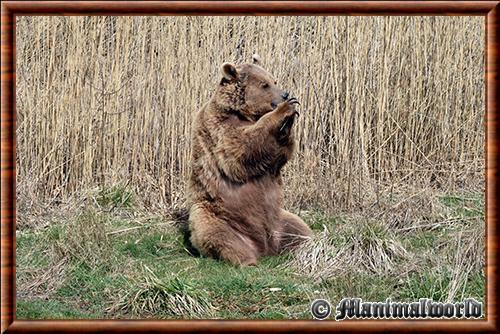
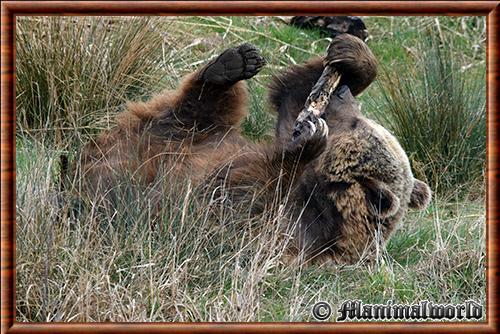
Retrouvez ci-dessous quelques photographies de l'ours brun. Cliquez sur les images pour les agrandir. Les photographies présentées ci-dessous sont soumises à des droits d'auteur. Pour toute utilisation, merci de respecter la licence de ces photographies et d'effectuer un lien retour vers notre site: © Manimalworld - CC-BY-NC-SA.


CLASSIFICATION
| Nom commun | Ours brun |
| English name | Brown bear |
| Español nombre | Oso pardo |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Caniformia |
| Famille | Ursidae |
| Sous-famille | Ursinae |
| Genre | Ursus |
| Nom binominal | Ursus arctos |
| Décrit par | Carl von Linné (Linnaeus) |
| Date | 1758 |
Satut IUCN |  |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Linné, C. (1758). Systema Naturae per regna tria naturae, secundum classes, ordines, genera, species, cum characteribus, differentiis, synonymis, locis. 10e édition.
Pasitschniak-Arts, M. (1993). Ursus arctos. Mammalian Species, 439, 1-10.
Schwartz, C. C., Miller, S. D., Haroldson, M. A. (2003). Grizzly bear. In Feldhamer, G. A. et al. (éds), Wild Mammals of North America, 2ᵉ éd., Johns Hopkins University Press, 556-586.
Chapron, G. et al. (2014). Recovery of large carnivores in Europe's modern human-dominated landscapes. Science, 346, 1517-1519.
Kaczensky, P. et al. (2013). Status, management and distribution of large carnivores – bear, lynx, wolf & wolverine – in Europe. Rapport pour la Commission européenne.
Bojarska, K., Selva, N. (2012). Spatial patterns in brown bear Ursus arctos diet: the role of geographical and environmental factors. Mammal Review, 42, 120-143.
Hilderbrand, G. V. et al. (1999). Importance of meat, particularly salmon, to body size, population productivity, and conservation of North American brown bears. Canadian Journal of Zoology, 77, 132-138.
Hilderbrand, G. V. et al. (1999). Role of brown bears in the transfer of marine nitrogen to terrestrial ecosystems. Oecologia, 121, 546-550.
Erlenbach, J. A. et al. (2014). Macronutrient optimization and energy maximization determine diets of brown bears. Journal of Mammalogy, 95, 160-168.
Swenson, J. E. et al. (1997). Infanticide caused by hunting of male bears. Nature, 386, 450-451.
Bellemain, E., Swenson, J. E., Taberlet, P. (2006). Mating strategies in relation to sexually selected infanticide in a non-social carnivore: the brown bear. Ethology, 112, 238-246.
Ordiz, A., Støen, O.-G., Delibes, M., Swenson, J. E. (2011). Predators or prey? Spatio-temporal discrimination of human-derived risk by brown bears. Oecologia, 166, 59-67.
Manchi, S., Swenson, J. E. (2005). Denning behaviour of Scandinavian brown bears Ursus arctos. Wildlife Biology, 11, 123-132.
Evans, A. L. et al. (2016). Drivers of hibernation in the brown bear. Frontiers in Zoology, 13, 7.
Herrero, S. (2002). Bear Attacks: Their Causes and Avoidance, éd. révisée, Lyons Press.
Palomares, F., Caro, T. M. (1999). Interspecific killing among mammalian carnivores. The American Naturalist, 153, 492-508.
Gunther, K. A., Smith, D. W. (2004). Interactions between wolves and female grizzly bears with cubs in Yellowstone National Park. Ursus, 15, 232-238.
Murphy, K. M. et al. (1998). Encounter competition between bears and cougars: some ecological implications. Ursus, 10, 55-60.
Seryodkin, I. V. et al. (2003). Denning ecology of brown bears and Asiatic black bears in the Russian Far East. Ursus, 14, 159-167.
Zedrosser, A., Dahle, B., Swenson, J. E., Gerstl, N. (2001). Status and management of the brown bear in Europe. Ursus, 12, 9-20.
Proctor, M. F. et al. (2012). Population fragmentation and inter-ecosystem movements of grizzly bears in western Canada and the northern United States. Wildlife Monographs, 180, 1-46.
Pigeon, K. E. et al. (2016). Staying cool in a changing landscape: the influence of maximum daily ambient temperature on grizzly bear habitat selection. Oecologia, 181, 1101-1116.
McLellan, B. N. et al. (2017). Ursus arctos. The IUCN Red List of Threatened Species 2017: e.T41688A121229971.
Servheen, C., Herrero, S., Peyton, B. (éds) (1999). Bears: Status Survey and Conservation Action Plan. IUCN/SSC Bear and Polar Bear Specialist Groups.
Linnell, J. D. C., Salvatori, V., Boitani, L. (2008). Guidelines for population level management plans for large carnivores in Europe. Rapport de la Large Carnivore Initiative for Europe.
Ciucci, P., Boitani, L. (2008). The Apennine brown bear: a critical review of its status and conservation problems. Ursus, 19, 130-145.
Merriam, C. H. (1918). Review of the grizzly and big brown bears of North America (genus Ursus). North American Fauna, 41.
Rausch, R. L. (1963). Geographic variation in size in North American brown bears, Ursus arctos L., as indicated by condylobasal length. Canadian Journal of Zoology, 41, 33-45.
Hall, E. R. (1981). The Mammals of North America, 2ᵉ éd., John Wiley & Sons.
Pocock, R. I. (1932). The black and brown bears of Europe and Asia. Journal of the Bombay Natural History Society, 35, 771-823.
Kurtén, B. (1976). The Cave Bear Story. Columbia University Press.
Taberlet, P., Bouvet, J. (1994). Mitochondrial DNA polymorphism, phylogeography, and conservation genetics of the brown bear Ursus arctos in Europe. Proceedings of the Royal Society B, 255, 195-200.
Randi, E. et al. (1994). Mitochondrial DNA sequence divergence among some west European brown bear (Ursus arctos L.) populations. Heredity, 73, 480-489.
Waits, L. P. et al. (1998). Mitochondrial DNA phylogeography of the North American brown bear and implications for conservation. Conservation Biology, 12, 408-417.
Barnes, I. et al. (2002). Dynamics of Pleistocene population extinctions in Beringian brown bears. Science, 295, 2267-2270.
Miller, W. et al. (2012). Polar and brown bear genomes reveal ancient admixture and demographic footprints of past climate change. PNAS, 109, E2382-E2390.
Davison, J. et al. (2011). Late-Quaternary biogeographic scenarios for the brown bear (Ursus arctos), a wild mammal model species. Quaternary Science Reviews, 30, 418-430.
Korsten, M. et al. (2009). Sudden expansion of a single brown bear maternal lineage across northern continental Eurasia after the last ice age. Molecular Ecology, 18, 1963-1979.
Liu, S. et al. (2014). Population genomics reveals recent speciation and rapid evolutionary adaptation in polar bears. Cell, 157, 785-794.