
Grizzly (Ursus arctos horribilis)
Le grizzly (Ursus arctos horribilis) est la sous-espèce nord-américaine continentale de l'ours brun (Ursus arctos), l'un des plus grands carnivore terrestres de l'hémisphère Nord. Appartenant à la grande famille des ursidés (Ursidae), ce prédateur charismatique se distingue par sa silhouette massive, son intelligence remarquable et son adaptation poussée aux environnements sauvages. Autrefois largement répandu à travers une vaste portion de l'ouest du continent, cet animal symbolise à la fois la force indomptable de la nature sauvage et la vulnérabilité de la faune face à l'expansion humaine. Sa présence historique et actuelle façonne profondément les paysages qu'il habite, influençant la dynamique des populations végétales et animales par son rôle écologique d'espèce clé. Son histoire est indissociable de celle de la colonisation de l'Ouest américain, qui l'a exterminé sur la quasi-totalité de son ancienne aire méridionale.

© Giff Beaton - iNaturalist
 CC-BY-NC (Certains droits réservés)
 DESCRIPTION
Le grizzly est un ours massif et trapu dont la silhouette se reconnaît d'emblée à la bosse musculeuse qui surmonte ses épaules. Cette saillie, formée par les muscles du dos et de l'épaule attachés à de hautes apophyses épineuses vertébrales, fournit la puissance de ses membres antérieurs, adaptés au creusement et au fouissage. La tête est large, le profil du museau concave, les oreilles courtes et arrondies, les yeux petits. Le crâne, robuste, porte de fortes crêtes sagittales chez les vieux mâles, auxquelles s'ancrent les puissants muscles masticateurs.
Le dimorphisme sexuel est marqué. Les mâles adultes pèsent en général entre 180 et 360 kilogrammes, les femelles entre 100 et 200, mais ces valeurs varient fortement selon la latitude, la saison et la richesse du milieu : les ours du littoral alaskien, qui profitent des remontées de saumons, dépassent souvent de très loin ceux de l'intérieur des Rocheuses, et certains mâles atteignent ou franchissent les 450 kilogrammes. Debout sur ses pattes arrière, un grand mâle mesure jusqu'à deux mètres et demi, tandis que la longueur tête-corps atteint couramment entre 1,7 et 2,5 mètres et la hauteur au garrot environ un mètre à un mètre vingt. La queue reste vestigiale, de dix à quinze centimètres environ. Le poids fluctue d'ailleurs de manière spectaculaire au fil de l'année, un individu pouvant gagner une part considérable de sa masse en quelques mois d'engraissement automnal.
Le pelage, épais et double, se compose d'un sous-poil dense et de longs poils de garde. Sa teinte va du blond pâle au brun sombre, presque noir, en passant par le roux et le cannelle, et se distingue souvent par l'extrémité argentée ou dorée des poils de garde, qui donne à l'animal son aspect givré. La coloration varie au sein d'une même portée et n'a donc pas de valeur diagnostique. Les griffes, non rétractiles, droites et peu courbées, mesurent de six à dix centimètres sur les pattes antérieures et servent avant tout à creuser, à retourner les pierres et à déterrer racines, rongeurs et bulbes; elles sont bien plus longues que celles de lours noir américain, ce qui aide à distinguer les deux espèces, avec la bosse et le profil du visage.
La denture, de quarante-deux dents, reflète le régime omnivore : les carnassières sont peu spécialisées et les molaires larges et aplaties permettent de broyer végétaux et graines, tandis que les canines, longues et puissantes, servent à saisir et à défendre. L'odorat est l'organe sensoriel dominant, capable de repérer une charogne ou des baies à grande distance; l'ouïe est bonne et la vue, médiocre mais plus performante qu'on ne le croit souvent, s'accommode aussi de la faible lumière. Malgré sa masse, le grizzly se déplace en plantigrade avec une aisance surprenante et peut, sur de courtes distances, dépasser 50 km/h. Les traces, qui aident à l'identifier, montrent cinq doigts et les marques des griffes bien en avant des coussinets.

© Amir Said - iNaturalist
CC-BY-NC (Certains droits réservés)HABITAT
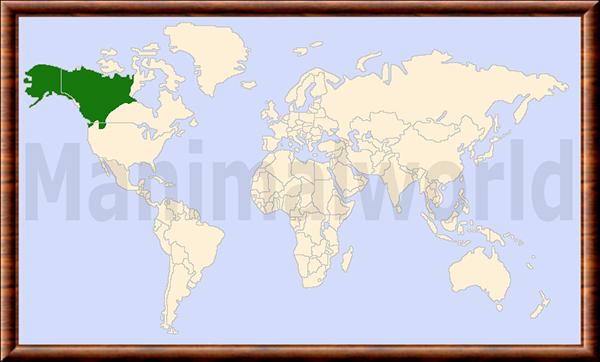
À l'arrivée des Européens, le grizzly occupait l'ensemble de l'ouest de l'Amérique du Nord, depuis l'Alaska et le Yukon jusqu'au nord du Mexique, et des côtes du Pacifique jusqu'aux Grandes Plaines, où il fréquentait surtout les vallées fluviales. Plusieurs dizaines de milliers d'individus peuplaient alors les États-Unis contigus, des prairies californiennes aux montagnes du Sud-Ouest. Cette aire s'est effondrée entre le milieu du XIXe siècle et les années 1970 sous l'effet de la colonisation, de la chasse, de l'empoisonnement et de la conversion des terres, si bien que le grizzly ne subsiste plus aujourd'hui que dans une fraction infime de son territoire méridional d'origine.
Le noyau de l'aire actuelle se situe dans le nord-ouest du continent. L'Alaska abrite la plus importante population, de l'ordre de trente mille ours bruns toutes formes confondues, tandis que le Canada en héberge encore quelque vingt-cinq mille, répartis entre le Yukon, les Territoires du Nord-Ouest, l'ouest du Nunavut, la Colombie-Britannique et l'Alberta, l'espèce ayant disparu des Prairies. Aux États-Unis contigus, environ deux mille grizzlis survivent dans quelques îlots montagneux du Montana, de l'Idaho, du Wyoming et de l'État de Washington : l'écosystème du Grand Yellowstone, celui de la Continental Divide nord, ainsi que les massifs isolés de Cabinet-Yaak, de la Selkirk et des North Cascades, où les effectifs sont extrêmement faibles.
Le grizzly est un animal de grands espaces, aux exigences écologiques étendues. Il exploite une mosaïque de milieux qu'il parcourt au rythme des saisons : forêts de conifères et prairies subalpines, éboulis et versants alpins, ripisylves et marais, toundra arctique dans le Nord, forêts pluviales tempérées et estuaires sur le littoral du Pacifique. Au printemps, il descend volontiers vers les basses altitudes pour exploiter les premières herbes, les carcasses d'ongulés morts pendant l'hiver et les avalanches, ces couloirs où la végétation précoce affleure; en été il gagne les prairies d'altitude, puis, à l'automne, il recherche les zones à baies, à graines ou à saumons qui lui permettront de constituer ses réserves. Cette transhumance saisonnière, parfois de plusieurs dizaines de kilomètres, impose la continuité des habitats.
Les domaines vitaux traduisent cette exigence : ils s'étendent sur quelques dizaines à quelques centaines de kilomètres carrés pour les femelles et peuvent dépasser un millier pour les mâles dans les régions pauvres de l'intérieur, alors qu'ils se réduisent nettement sur les côtes où la nourriture est abondante. La densité, elle aussi, varie considérablement, de quelques individus pour mille kilomètres carrés dans l'Arctique à plusieurs dizaines pour cent kilomètres carrés dans les meilleurs sites côtiers. Le grizzly recherche par ailleurs des sites d'hivernage précis, généralement des pentes à sol stable et à couverture neigeuse durable, souvent à haute altitude dans les Rocheuses. Il tolère mal les routes et les zones bâties, qu'il évite ou traverse à la faveur de la nuit, de sorte que la qualité de son habitat dépend autant du dérangement que de la ressource alimentaire.
© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
ALIMENTATION
Le grizzly est un omnivore opportuniste dont le régime, d'une extrême plasticité, dépend de la région, de la saison et même de l'année. Contrairement à ce que suggère son classement parmi les carnivores, l'essentiel de son apport énergétique provient souvent de végétaux dans l'intérieur du continent : herbes, carex et prêles au printemps, ombellifères, racines et bulbes, puis baies, en particulier les airelles et les amélanchiers à l'été et à l'automne. Le fouissage laisse dans les prairies alpines de vastes surfaces retournées, qui contribuent à aérer le sol et à diversifier la végétation. Les insectes et leurs larves et fourmis, complètent ce menu.
La part animale reste néanmoins déterminante, car elle fournit les protéines et les lipides nécessaires à la croissance et à la reproduction. Le grizzly chasse les jeunes de wapiti et d'orignal et déterre marmottes et spermophiles dans leurs terriers. Il exploite aussi abondamment les charognes : les ongulés morts durant l'hiver ou tués par les loups, dont il dépossède fréquemment les meutes. À la belle saison, les papillons de nuit (noctuelles) s'accumulent par milliers dans les éboulis d'altitude et offrent à certains ours du Grand Yellowstone un apport lipidique concentré et à faible coût de capture. Les chasses actives d'adultes de grands ongulés demeurent, en revanche, occasionnelles.
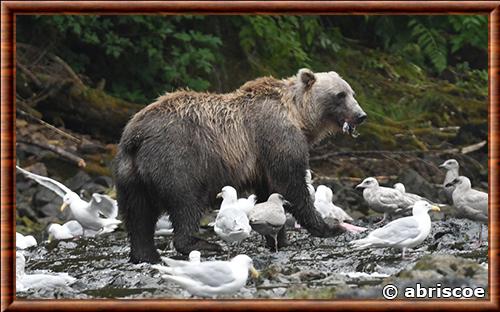
Là où elles existent, deux ressources concentrées structurent la biologie des populations. Sur le littoral pacifique et dans certains bassins de l'Alaska, les remontées de saumons fournissent un apport de graisse et de protéines si abondant que l'ours ne consomme parfois que la chair grasse, les oeufs et le cerveau des poissons; l'accès à cette manne explique en grande partie la taille exceptionnelle des individus côtiers et les fortes densités qu'ils atteignent. Dans le Grand Yellowstone, où le saumon fait défaut, les graines du pin à écorce blanche jouent un rôle comparable : les écureuils roux les stockent dans des caches, que le grizzly repère à l'odorat et pille à l'automne, et les années de mauvaise production, ou le dépérissement des peuplements, ont modifié ses déplacements et accru les conflits avec l'homme.
Cette diversité alimentaire s'inscrit dans un cycle énergétique strict. À la sortie de la tanière, l'animal, amaigri, se nourrit peu et cherche une nourriture facile à digérer; l'appétit augmente à mesure que la végétation avance. À partir de la fin de l'été, il entre en hyperphagie : il peut alors consommer, selon les estimations, de l'ordre de vingt mille kilocalories par jour et consacrer l'essentiel de son temps à s'alimenter, pour accumuler les réserves de graisse qui soutiendront le jeûne hivernal et, chez la femelle, la gestation et la lactation. Durant l'hibernation, il ne mange, ne boit et n'excrète pratiquement rien; ses besoins sont couverts par le catabolisme des lipides et le recyclage de l'urée, ce qui lui permet de préserver sa masse musculaire.
© abriscoe - iNaturalist
CC-BY-NC (Certains droits réservés)REPRODUCTION
La reproduction du grizzly est l'une des plus lentes de tous les mammifères terrestres nord-américains, ce qui pèse lourdement sur la dynamique de ses populations. Les femelles atteignent la maturité sexuelle tardivement, entre quatre et sept ans selon la qualité de l'habitat, et parfois plus tard dans les régions pauvres. Comme les jeunes restent auprès de leur mère deux à trois ans, l'intervalle entre deux portées est en général de trois à quatre ans, si bien qu'une femelle n'élève, au cours d'une vie de vingt à vingt-cinq ans, qu'une poignée de portées, dont une partie seulement parvient à l'âge adulte.
L'accouplement a lieu de mai à juillet, avec un pic en juin, et le système d'appariement est polygame : les mâles recherchent activement les femelles en oestrus, qu'ils suivent parfois pendant plusieurs jours, et les couples éphémères peuvent durer de quelques heures à plus de deux semaines. Les femelles s'accouplent souvent avec plusieurs partenaires, et une même portée peut compter des petits de pères différents, une stratégie qui pourrait réduire le risque d'infanticide en brouillant la paternité. L'ovulation est induite par la copulation, ce qui favorise la fécondation lors de rencontres brèves.
L'ovule fécondé se divise brièvement puis reste à l'état de blastocyste libre dans l'utérus pendant plusieurs mois : c'est l'implantation différée, qui ne se produit qu'à la fin de l'automne, au moment où l'animal entre en hibernation. Ce mécanisme ajuste la gestation à l'état corporel de la mère. Une femelle trop maigre n'implante pas ses embryons, ce qui lie la fécondité à l'abondance des ressources de l'année écoulée. Le développement foetal proprement dit ne dure que six à huit semaines, et les petits naissent en janvier ou février, dans la tanière.
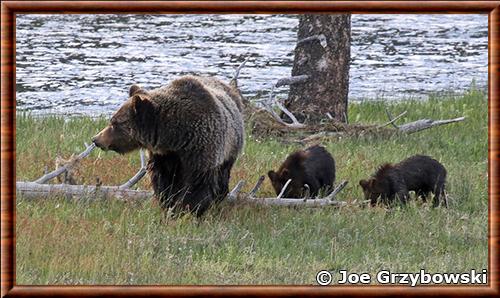
La portée compte le plus souvent un à trois oursons, deux en moyenne, qui naissent aveugles, presque nus et pesant à peine un demi-kilogramme. Allaités dans la tanière avec un lait très riche en lipides, ils en sortent avec leur mère en avril ou mai, pesant alors quelques kilogrammes, et restent à ses côtés deux ans, parfois trois, période pendant laquelle ils apprennent à identifier les aliments, à creuser et à éviter les dangers, notamment les mâles adultes. La séparation survient souvent au printemps, quand la mère entre de nouveau en oestrus; les jeunes mâles se dispersent alors plus loin que les jeunes femelles, qui s'installent volontiers près du domaine maternel. La mortalité de la première année est élevée, dépassant parfois le tiers de la portée dans certaines populations. Ces paramètres démographiques expliquent la fragilité des populations, qui ne peuvent compenser que difficilement une mortalité adulte accrue.
© Joe Grzybowski - iNaturalist
CC-BY-NC (Certains droits réservés)COMPORTEMENT
Le grizzly est un animal essentiellement solitaire, hormis les femelles accompagnées de leurs petits, les couples éphémères de la saison des amours et les rassemblements saisonniers autour de ressources concentrées. Il n'est pas territorial au sens strict&,nsp;: les domaines vitaux se chevauchent largement et les rencontres sont régulées par une hiérarchie de dominance fondée sur la taille, le sexe et l'âge, où les grands mâles priment sur les femelles et les subadultes, les mères accompagnées d'oursons compensant leur infériorité de taille par une forte agressivité. Sur les rivières à saumons de l'Alaska, comme à McNeil River, des dizaines d'ours pêchent côte à côte à quelques mètres les uns des autres, en respectant des distances individuelles et des codes de posture qui évitent le plus souvent les combats.
La communication passe par des signaux olfactifs, visuels et sonores. Les ours frottent leur dos et leur cou contre des arbres et des poteaux, mordent et griffent l'écorce, déposant ainsi des informations sur l'identité, le sexe et la condition de l'individu à l'intention de leurs congénères. Le répertoire vocal comprend des souffles, des grognements et des rugissements en situation de menace, ainsi que des gémissements ou des ronronnements chez les mères et les oursons. Les postures précisent l'humeur : la station debout sert le plus souvent à mieux voir et sentir plutôt qu'à menacer, tandis qu'oreilles rabattues, claquements de mâchoires et tête basse annoncent une charge, qui n'est d'ailleurs dans la majorité des cas qu'un bluff.
Le cycle annuel est rythmé par l'hibernation, qui dure de cinq à sept mois selon la latitude et l'altitude. Les ours creusent ou aménagent leur tanière, généralement sur une pente boisée exposée au nord, au début de l'automne, et y pénètrent entre octobre et décembre, les femelles gestantes étant les premières à s'enfermer; au printemps, les mâles adultes ressortent les premiers, dès mars, et les mères avec leurs oursons les dernières, parfois en mai. Il ne s'agit pas d'une hibernation profonde au sens des petits mammifères, car la température corporelle ne baisse que de quelques degrés et l'animal peut se réveiller rapidement, mais le métabolisme est fortement ralenti, sans perte notable de masse musculaire ni d'os.
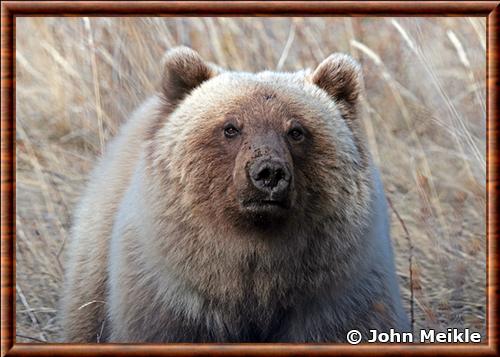
Le rythme d'activité est essentiellement crépusculaire, mais il s'adapte fortement aux conditions locales. Là où la fréquentation humaine est élevée, les grizzlis deviennent nocturnes et évitent les sentiers et les routes aux heures d'affluence, ce qui limite les rencontres sans supprimer les risques. Curieux et doté d'une grande capacité d'apprentissage, l'ours mémorise l'emplacement des ressources, sait ouvrir des poubelles ou des tentes et transmet parfois ces comportements à ses petits, d'où des individus "à problème" qui s'habituent à la nourriture d'origine humaine. La très grande majorité des attaques sur l'homme résultent d'une rencontre à courte distance avec un animal surpris, une mère protégeant ses petits ou un ours défendant une carcasse; les attaques prédatrices demeurent rares, et le spray répulsif s'est montré au moins aussi efficace que les armes à feu.
© John Meikle - iNaturalist
CC-BY-NC (Certains droits réservés)PRÉDATION
À l'âge adulte, le grizzly n'a pratiquement aucun prédateur naturel : sa taille, sa force et son agressivité défensive le placent au sommet de la chaîne alimentaire de la plupart des écosystèmes qu'il fréquente. Son seul véritable ennemi est l'homme, dont l'impact est traité plus loin; hors de cette pression, les cas documentés d'adultes tués par un autre animal se limitent presque aux combats entre ours. Les menaces d'origine naturelle concernent donc presque exclusivement les oursons de l'année et les jeunes subadultes, dont la survie dépend étroitement de la vigilance et de la combativité de leur mère.
Le principal danger naturel est paradoxalement l'ours lui-même. L'infanticide par les mâles adultes, bien documenté chez le grizzly comme chez les autres ours bruns, est une cause importante de mortalité des oursons. En éliminant une portée, un mâle interrompt la lactation, ramène la femelle en oestrus et augmente ses propres chances de paternité. Les mères en tiennent compte, évitant parfois les zones fréquentées par les grands mâles, même au prix d'habitats moins riches ou plus proches des humains. Des travaux menés en Scandinavie et en Alaska suggèrent en outre que la chasse des mâles adultes, en renouvelant les mâles résidents, peut accroître la mortalité des oursons.
Les autres carnivores ne représentent qu'une menace secondaire. Le loup gris, réintroduit dans le Grand Yellowstone en 1995, entretient avec le grizzly une relation faite d'évitement et de compétition pour les carcasses, où l'ours, plus lourd, l'emporte le plus souvent. Des meutes peuvent tuer un ourson isolé, mais les observations de Yellowstone montrent que les femelles accompagnées de leurs petits sont rarement inquiétées, et qu'elles repoussent le plus souvent les loups. Le puma, dont l'aire recoupe celle du grizzly dans les Rocheuses, est également soupçonné de s'en prendre à de très jeunes individus, mais les cas documentés sont rarissimes. Certains auteurs voient d'ailleurs dans le retour du loup un bénéfice indirect pour le grizzly : en réduisant la pression des wapitis sur les arbustes fruitiers, il favoriserait la production de baies, hypothèse toutefois discutée.
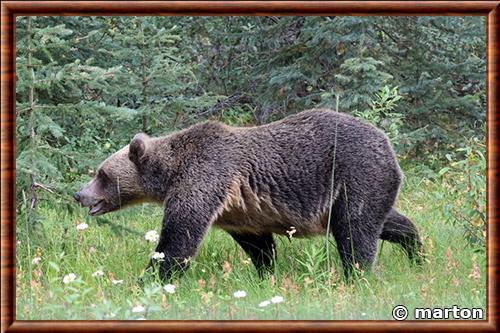
À l'échelle des écosystèmes, le vrai régulateur de l'espèce, hors ressources alimentaires, reste l'homme, qui a longtemps fait office de prédateur de substitution par la chasse, l'empoisonnement et les captures de contrôle.
© marton - iNaturalist
CC-BY-NC (Certains droits réservés)MENACES
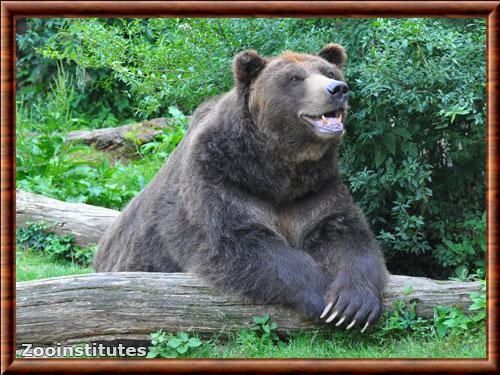
La menace principale est d'origine humaine et se joue sur plusieurs plans. La mortalité directe, d'abord : dans les populations des États-Unis contigus et du sud du Canada, la quasi-totalité des décès d'adultes dont la cause est connue résulte d'une intervention humaine, qu'il s'agisse de tirs légaux en légitime défense, de braconnage, de collisions routières et ferroviaires, ou de retraits décidés par les gestionnaires après des conflits avec des éleveurs ou des visiteurs. Compte tenu de la lenteur de la reproduction, une mortalité annuelle même modérée d'individus adultes, en particulier de femelles, suffit à compromettre la viabilité d'une population, d'où l'attention portée aux seuils de mortalité tolérables dans les plans de gestion.
La perte et la fragmentation de l'habitat viennent ensuite. L'exploitation forestière, l'exploration et l'exploitation pétrolières, gazières et minières, l'urbanisation des vallées, les stations de ski et le développement des loisirs de plein air multiplient les routes, dont la densité est l'un des meilleurs prédicteurs de la mortalité et de l'évitement des ours, qui délaissent alors des habitats pourtant de bonne qualité. Les grandes infrastructures, telles que les autoroutes transcontinentales et les voies ferrées, isolent les populations en des îlots que les femelles franchissent rarement, empêchant les échanges de gènes. Cette fragmentation est particulièrement critique pour les petites populations du Cabinet-Yaak, du Selkirk et des North Cascades, mais elle touche aussi le Grand Yellowstone, resté isolé des populations du nord depuis un siècle environ.
Cet isolement a une conséquence génétique. Les grizzlis du Grand Yellowstone, ramenés à quelques centaines d'individus au milieu du XXe siècle, présentent une diversité génétique nettement inférieure à celle des populations canadiennes, avec des risques de consanguinité à long terme qu'un à deux migrants efficaces par génération suffiraient à atténuer. Le réchauffement climatique ajoute une pression indirecte mais massive. Il bouleverse la phénologie des ressources, avance la fonte des neiges et décale les pics de disponibilité alimentaire; il favorise les infestations de dendroctones et la rouille vésiculeuse qui déciment le pin à écorce blanche, ressource clé de l'automne, et il menace, sur le littoral, la régularité des remontées de saumons. Ces changements pourraient pousser davantage d'ours vers les zones habitées.
Reste la cohabitation, souvent conflictuelle. L'accès de l'ours à la nourriture d'origine humaine, qu'il s'agisse de déchets, d'aliments pour animaux, de ruches, de fourrage ou de carcasses de bétail, crée des habituations qui conduisent souvent à son élimination. Les attaques d'ours sur des randonneurs, chasseurs ou campeurs restent statistiquement rares, mais leur portée médiatique nourrit une hostilité qui fragilise les programmes de protection dans les régions rurales. La chasse, par ailleurs, reste autorisée dans plusieurs juridictions, notamment en Alaska et dans le Yukon, alors que la Colombie-Britannique y a mis fin en 2017; son effet sur la structure d'âge et sur la mortalité des oursons reste débattu.
Crédit photo: Alex Kantorovich - Zooinstitutes
CONSERVATION
Le statut de conservation du grizzly est contrasté selon l'échelle considérée. Ursus arctos dans son ensemble est classé dans la catégorie "Préoccupation mineure" (LC) sur la Liste rouge de l'IUCN , compte tenu de ses effectifs élevés en Russie, en Alaska et au Canada, et figure à l'annexe II de la CITES, à l'exception de quelques populations d'Asie et du Mexique inscrites à l'annexe I. Au Canada, le COSEPAC a désigné la population de l'Ouest comme "préoccupante" en 2012, tandis que la population des Prairies a été jugée disparue; l'Alberta classe, depuis 2010, ses grizzlis comme menacés. Aux États-Unis, la population des États contigus est inscrite comme menacée au titre de l'Endangered Species Act depuis 1975, l'Alaska n'étant pas concerné.
Le rétablissement de la sous-espèce dans le sud repose sur six zones de récupération définies par le plan de 1993 : le Grand Yellowstone, la Continental Divide nord, le Cabinet-Yaak, la Selkirk, les North Cascades et la Bitterroot, cette dernière n'abritant plus d'ours. Dans le Grand Yellowstone, la population est passée de l'ordre de deux à trois cents individus au milieu des années 1970 à plus de neuf cents aujourd'hui, un succès qui a conduit à deux tentatives de retrait de la liste, en 2007 puis en 2017, toutes deux invalidées par les tribunaux, notamment pour avoir insuffisamment pris en compte le déclin du pin à écorce blanche et les risques génétiques. La Continental Divide nord compte environ un millier d'ours.
La conservation repose aujourd'hui sur trois leviers complémentaires. Le premier est la réduction de la mortalité d'origine humaine : conteneurs à déchets résistants aux ours, clôtures électriques autour des ruchers et des élevages, obligations de stockage de la nourriture en camping et éducation à l'usage du spray répulsif, qui réduisent sensiblement les conflits lorsqu'ils sont appliqués de façon systématique. Le deuxième est la protection et la connectivité des habitats, par des limitations de la densité de routes dans les aires de récupération, des écoducs et passages inférieurs tels que ceux du parc national de Banff, et des servitudes de conservation sur les terres privées. Le troisième est le suivi scientifique, assuré notamment par l'Interagency Grizzly Bear Study Team, qui surveille la population du Grand Yellowstone depuis 1973 par radiopistage et analyses génétiques.
Dans l'ouest du Canada, la gestion relève des provinces : l'Alberta a suspendu la chasse en 2006 et adopté un plan de rétablissement, tandis que l'initiative Yellowstone to Yukon vise à relier les populations par un réseau d'aires protégées et de corridors. Deux projets de restauration ont été étudiés dans le nord-ouest des États-Unis : celui de la Bitterroot, approuvé en 2000 mais jamais mis en oeuvre, et celui des North Cascades, pour lequel un plan fédéral a été adopté en 2024, sa concrétisation restant tributaire des décisions politiques. Il faut aussi rappeler que deux formes voisines ont disparu : le grizzly de Californie, dernier signalé en 1924 environ, et le grizzly mexicain, exterminé dans les années 1960.

© Jamie Schultz - iNaturalist
CC-BY-NC (Certains droits réservés)HYBRIDATION
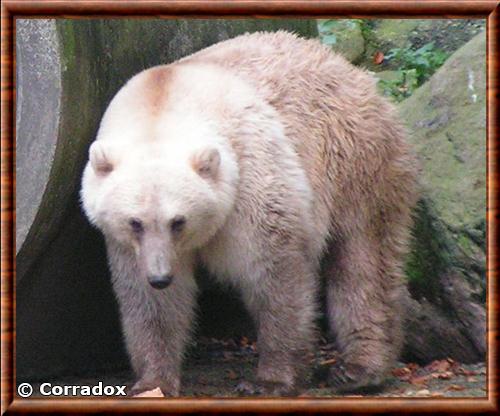
L'hybridation chez le grizzly constitue un sujet qui illustre la porosité relative des barrières génétiques entre certaines espèces d'ursidés, favorisée par leur proximité évolutive. Sur le plan naturel, les cas d'hybridation les plus documentés impliquent le grizzly et l'ours polaire, deux taxons étroitement apparentés dont les aires de distribution se chevauchent de plus en plus dans les régions arctiques et subarctiques septentrionales. Ces croisements opportunistes en milieu sauvage, bien que rares, donnent naissance à une descendance hybride souvent désignée par les termes vernaculaires de grolar ou de pizzly.
Les analyses génétiques approfondies menées sur ces spécimens sauvages ont permis de confirmer des accouplements interspécifiques, mettant en lumière des cas où des mâles grizzlis ont fécondé des femelles polaires, générant ainsi des individus de première génération présentant un phénotype intermédiaire remarquable. Ce mélange phénotypique se manifeste par une morphologie crânienne intermédiaire, un pelage à la nuance caractéristique, ainsi que des griffes et une silhouette corporelle combinant les adaptations terrestres du grizzly et les traits maritimes de l'ours polaire. De surcroît, le suivi scientifique a mis en évidence des phénomènes de rétrocroisement, où certains hybrides de première génération se sont accouplés à nouveau avec des grizzlis, perpétuant ponctuellement un flux génétique interspécifique dans la nature, même si l'impact évolutif à long terme de ces évènements demeure globalement limité et circonscrit à des zones de contact restreintes.
un grizzly et un ours polaire
© Corradox - Wikimedia Commons
 CC-BY-SA (Certains droits réservés)
TAXONOMIE
L'histoire taxonomique du grizzly commence bien avant sa description formelle. Les premiers Européens à le rencontrer, dont le marchand de la Compagnie de la baie d'Hudson Henry Kelsey vers 1691, rapportèrent son existence dans les prairies, et les Autochtones le connaissaient depuis des millénaires, sous des noms et dans des traditions multiples. L'expédition de Lewis et Clark (1804-1806) en livra les premières descriptions détaillées, l'appelant tour à tour ours "blanc", "brun" ou "grisly", et insistant sur sa force redoutable. Ces récits servirent de base à l'Américain George Ord, qui, en 1815, publia dans une édition américaine de la Geography de Guthrie le nom Ursus horribilis, "l'ours horrible".
Sur le plan de l'espèce, le grizzly relève d'Ursus arctos Linnaeus, 1758, décrit à partir d'ours de Suède. Pendant plus d'un siècle, les naturalistes nord-américains décrivirent comme autant d'espèces distinctes les ours des différentes régions, en s'appuyant sur des caractères crâniens souvent minimes et sur des échantillons peu nombreux. Cette tendance culmina avec Clinton Hart Merriam qui, dans sa révision de 1918, reconnut plus de quatre-vingts formes de "grizzlis et grands ours bruns" réparties en deux groupes, les grizzlis proprement dits et les ours bruns côtiers, dont l'ours Kodiak. Ce découpage, fondé sur des séries de crânes parfois réduites à un ou deux spécimens, allait rester admis pendant quelques décennies.
Dans les années 1960, Robert Rausch, analysant la variation géographique de la taille du crâne des ours bruns nord-américains, montra que la plupart des formes de Merriam n'étaient que des variantes locales et proposa de n'en conserver que deux sous-espèces, Ursus arctos horribilis pour le continent et Ursus arctos middendorffi pour l'archipel de Kodiak. Cette simplification fut largement adoptée, mais les compilations ultérieures, telles que celles de Hall (1981) et de Wozencraft (2005), continuent de lister plusieurs sous-espèces nord-américaines, dont horribilis, sans que leur validité biologique fasse consensus. Dans l'usage courant, le terme grizzly désigne aujourd'hui les ours de l'intérieur du continent, tandis que "ours brun côtier" ou "ours de Kodiak" renvoie à des populations que la génétique ne sépare pas toujours nettement.
La génétique moléculaire a profondément renouvelé le débat. Les travaux de Talbot et Shields (1996), puis de Waits et de ses collègues (1998), fondés sur l'ADN mitochondrial, ont montré que les ours bruns nord-américains se répartissent en plusieurs lignées dont la distribution reflète l'histoire de la colonisation de l'Amérique du Nord depuis la Béringie au Pléistocène plutôt que les limites des sous-espèces classiques. Talbot et Shields mirent aussi en évidence que les ours bruns des îles Admiralty, Baranof et Chichagof portent un ADN mitochondrial plus proche de celui de l'ours polaire que de celui des autres ours bruns, ce qui rendait l'ours brun paraphylétique. Les analyses d'ADN ancien de Barnes et ses collaborateurs (2002) ont en outre révélé un renouvellement répété des populations béringiennes, et les données génomiques de Miller et ses collègues (2012) ont confirmé que ours polaires et ours bruns, dont la divergence remonte à quelques centaines de milliers d'années, ont échangé des gènes. Ces résultats invitent à voir dans horribilis un ensemble de populations plus commode à désigner qu'à définir.
CLASSIFICATION
| Nom commun | Grizzly |
| Autre nom | Grizzli |
| English name | Grizzly bear |
| Español nombre | Oso grizzly |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Caniformia |
| Famille | Ursidae |
| Sous-famille | Ursinae |
| Genre | Ursus |
| Espèce | Ursus arctos |
| Nom binominal | Ursus arctos horribilis |
| Décrit par | George Ord |
| Date | 1815 |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Ord, G. (1815). Dans Guthrie, W., A new geography, history, and commercial grammar, 2e éd. américaine, vol. 2. Johnson & Warner, Philadelphie.
Pasitschniak-Arts, M. (1993). Ursus arctos. Mammalian Species, 439, 1-10.
Schwartz, C.C., Miller, S.D. & Haroldson, M.A. (2003). Grizzly bear. In Feldhamer, G.A., Thompson, B.C. & Chapman, J.A. (dir.), Wild Mammals of North America, 2e éd., Johns Hopkins University Press, 556-586.
Servheen, C., Herrero, S. & Peyton, B. (dir.) (1999). Bears: Status Survey and Conservation Action Plan. IUCN/SSC Bear and Polar Bear Specialist Groups, Gland et Cambridge.
Herrero, S. (1985). Bear Attacks: Their Causes and Avoidance. Nick Lyons Books, Piscataway.
Mattson, D.J. & Merrill, T. (2002). Extirpations of grizzly bears in the contiguous United States, 1850-2000. Conservation Biology, 16, 1123-1130.
McLellan, B.N. & Hovey, F.W. (2001). Habitats selected by grizzly bears in a multiple use landscape. Journal of Wildlife Management, 65, 92-99.
Linnell, J.D.C., Swenson, J.E., Andersen, R. & Barnes, B. (2000). How vulnerable are denning bears to disturbance? Wildlife Society Bulletin, 28, 400-413.
Gibeau, M.L., Clevenger, A.P., Herrero, S. & Wierzchowski, J. (2002). Grizzly bear response to human development and activities in the Bow River Watershed, Alberta, Canada. Biological Conservation, 103, 227-236.
COSEWIC (2012). COSEWIC assessment and status report on the grizzly bear Ursus arctos in Canada. Committee on the Status of Endangered Wildlife in Canada, Ottawa.
Craighead, J.J., Sumner, J.S. & Mitchell, J.A. (1995). The Grizzly Bears of Yellowstone: Their Ecology in the Yellowstone Ecosystem, 1959-1992. Island Press, Washington, D.C.
Mattson, D.J., Blanchard, B.M. & Knight, R.R. (1991). Food habits of Yellowstone grizzly bears, 1977-1987. Canadian Journal of Zoology, 69, 1619-1629.
Mattson, D.J. (1997). Use of ungulates by Yellowstone grizzly bears. Biological Conservation, 81, 161-177.
Green, G.I., Mattson, D.J. & Peek, J.M. (1997). Spring feeding on ungulate carcasses by grizzly bears in Yellowstone National Park. Journal of Wildlife Management, 61, 1040-1055.
Gunther, K.A. & Renkin, R.A. (1990). Grizzly bear predation on elk calves and other fauna of Yellowstone National Park. International Conference on Bear Research and Management, 8, 329-334.
Hilderbrand, G.V. et al. (1999). Importance of meat, particularly salmon, to body size, population productivity, and conservation of North American brown bears. Canadian Journal of Zoology, 77, 132-138.
Costello, C.M. et al. (2014). Influence of whitebark pine decline on fall habitat use and movements of grizzly bears in the Greater Yellowstone Ecosystem. Ecology and Evolution, 4, 2004-2018.
Schwartz, C.C., Keating, K.A., Reynolds, H.V. et al. (2003). Reproductive maturation and senescence in the female brown bear. Ursus, 14, 109-119.
Swenson, J.E. et al. (1997). Infanticide caused by hunting of male bears. Nature, 386, 450-451.
Clapham, M., Nevin, O.T., Ramsey, A.D. & Rosell, F. (2012). A hypothetico-deductive approach to assessing the social function of chemical signalling in a non-territorial solitary carnivore. PLoS ONE, 7(4), e35404.
Herrero, S. & Higgins, A. (2003). Human injuries inflicted by bears in Alberta: 1960-98. Ursus, 14, 44-54.
Smith, T.S., Herrero, S., Debruyn, T.D. & Wilder, J.M. (2008). Efficacy of bear deterrent spray in Alaska. Journal of Wildlife Management, 72, 640-645.
Miller, S.D., Sellers, R.A. & Keay, J.A. (2003). Effects of hunting on brown bear cub survival and litter size in Alaska. Ursus, 14, 130-152.
Gunther, K.A. & Smith, D.W. (2004). Interactions between wolves and female grizzly bears with cubs in Yellowstone National Park. Ursus, 15, 232-238.
Ballard, W.B., Carbyn, L.N. & Smith, D.W. (2003). Wolf interactions with non-prey. In Mech, L.D. & Boitani, L. (dir.), Wolves: Behavior, Ecology, and Conservation, University of Chicago Press, 259-271.
Ripple, W.J. et al. (2014). Wolves trigger a trophic cascade to berries as alternative food for grizzly bears. Journal of Animal Ecology, 83, 223-233.
Nielsen, S.E., Herrero, S., Boyce, M.S. et al. (2004). Modelling the spatial distribution of human-caused grizzly bear mortalities in the Central Rockies ecosystem of Canada. Biological Conservation, 120, 101-113.
Mace, R.D., Waller, J.S., Manley, T.L., Lyon, L.J. & Zuuring, H. (1996). Relationships among grizzly bears, roads and habitat in the Swan Mountains, Montana. Journal of Applied Ecology, 33, 1395-1404.
Benn, B. & Herrero, S. (2002). Grizzly bear mortality and human access in Banff and Yoho National Parks, 1971-98. Ursus, 13, 213-221.
Proctor, M.F. et al. (2012). Population fragmentation and inter-ecosystem movements of grizzly bears in western Canada and the northern United States. Wildlife Monographs, 180, 1-46.
Miller, C.R. & Waits, L.P. (2003). The history of effective population size and genetic diversity in the Yellowstone grizzly (Ursus arctos). PNAS, 100, 4334-4339.
U.S. Fish and Wildlife Service (1993). Grizzly Bear Recovery Plan. Missoula, Montana.
Clevenger, A.P. & Waltho, N. (2005). Performance indices to identify attributes of highway crossing structures facilitating movement of large mammals. Biological Conservation, 121, 453-464.
Paetkau, D., et al. (2010). Genetic analysis of grizzly-polar bear hybrids. Molecular Ecology.
Stirling, I., & Derocher, A. E. (2012). Effects of climate warming on polar bears: a review of the evidence. Global Change Biology.
Linnaeus, C. (1758). Systema Naturae, 10e éd., vol. 1. Laurentius Salvius, Holmiae.
Moulton, G.E. (dir.) (1983-2001). The Journals of the Lewis and Clark Expedition. University of Nebraska Press, Lincoln.
Doughty, A.G. & Martin, C. (dir.) (1929). The Kelsey Papers. Public Archives of Canada, Ottawa.
Merriam, C.H. (1918). Review of the grizzly and big brown bears of North America (genus Ursus). North American Fauna, 41, 1-136.
Rausch, R.L. (1963). Geographic variation in size in North American brown bears, Ursus arctos L., as indicated by condylobasal length. Canadian Journal of Zoology, 41, 33-45.
Hall, E.R. (1981). The Mammals of North America, 2e éd. John Wiley & Sons, New York.
Talbot, S.L. & Shields, G.F. (1996). Phylogeography of brown bears (Ursus arctos) of Alaska and paraphyly within the Ursidae. Molecular Phylogenetics and Evolution, 5, 477-494.
Waits, L.P., Talbot, S.L., Ward, R.H. & Shields, G.F. (1998). Mitochondrial DNA phylogeography of the North American brown bear and implications for conservation. Conservation Biology, 12, 408-417.
Barnes, I. et al. (2002). Dynamics of Pleistocene population extinctions in Beringian brown bears. Science, 295, 2267-2270.
Miller, W. et al. (2012). Polar and brown bear genomes reveal ancient admixture and demographic footprints of past climate change. PNAS, 109, E2382-E2390.