
Ours malais (Helarctos malayanus)
L’ours malais (Helarctos malayanus est le plus petit représentant de la famille des ursidés et le seul membre du genre Helarctos. Il vit dans les forêts tropicales humides d’Asie du Sud-Est, de la frontière indo-birmane jusqu’à Sumatra et Bornéo. Reconnaissable à son pelage ras et noir et à la tache claire en croissant qui orne sa poitrine, il mène une existence discrète, en grande partie arboricole, et joue un rôle écologique important comme prédateur d’insectes sociaux et comme disperseur de graines. Son régime, adapté à une forêt où l’abondance des fruits varie fortement d’une année à l’autre, a façonné une morphologie singulière, notamment une langue exceptionnellement longue. Classée "Vulnérable" (VU) sur la Liste rouge de l'IUCN, l’espèce subit une érosion rapide de son habitat et une pression de braconnage soutenue, ce qui en fait l’un des ours les moins bien connus et les plus menacés du monde. L’ours malais est également connu sous le nom d’Ours des cocotiers ou Bruan.
© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
 DESCRIPTION
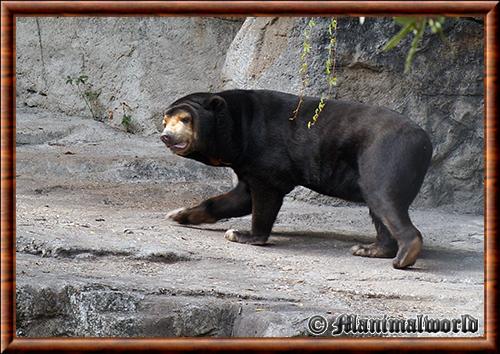
L’ours malais est le plus petit des ours actuels. Le corps mesure en général entre 100 et 140 centimètres, pour une hauteur au garrot d’environ 70 centimètres, et la queue, réduite à un moignon de quelques centimètres, passe presque inaperçue. Le poids varie d’une vingtaine à une soixantaine de kilogrammes, les mâles dépassant les femelles de dix à vingt pour cent selon les populations. Cette taille modeste, associée à une grande agilité, convient à un animal qui passe une part considérable de son temps dans les arbres.
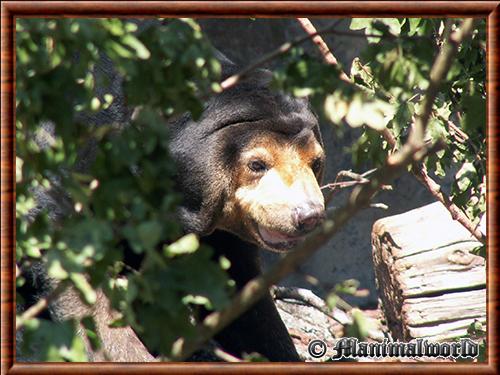
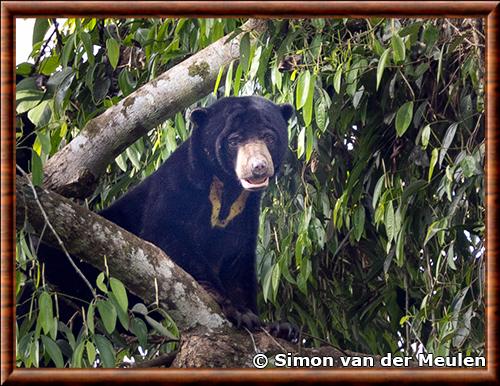
Le pelage est court, dense et lisse, d’un noir de jais, ce qui limite la surchauffe dans un milieu équatorial. Le museau, court et assez large, est de teinte fauve à orangée, de même que les zones autour des yeux. La poitrine porte une marque en forme de croissant ou de fer à cheval, dont la couleur va du blanc crème au jaune orangé et dont le dessin est propre à chaque individu, ce qui permet aujourd’hui de les identifier sur les images de pièges photographiques. Les oreilles sont petites et arrondies, presque enfouies dans la fourrure, et la peau du cou est lâche et épaisse, ce qui permettrait à l’animal de se retourner contre un assaillant qui le saisirait par la nuque.
L’anatomie traduit nettement les habitudes alimentaires. La langue, longue d’environ vingt-cinq centimètres, sert à prélever le miel et les larves dans les nids d’abeilles, de guêpes et de termites. Les griffes, fortement recourbées et longues de plusieurs centimètres, permettent de grimper, de déchirer l’écorce et d’ouvrir les troncs pourris. Les pattes, dont les coussinets sont nus, présentent des plantes dépourvues de poils et des pieds tournés légèrement vers l’intérieur, adaptation classique à l’escalade. Le crâne est court et large, avec des muscles masticateurs puissants. Les canines sont proportionnellement très développées, tandis que les molaires, grandes et aplaties, broient les fruits fibreux et les noix dures. Cette puissance de mâchoire étonne chez un animal si petit : elle lui permet d’ouvrir des fruits protégés, jusqu’aux noix de coco. L’ensemble forme un ours compact, souple et musclé, très différent des grandes espèces tempérées.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)HABITAT
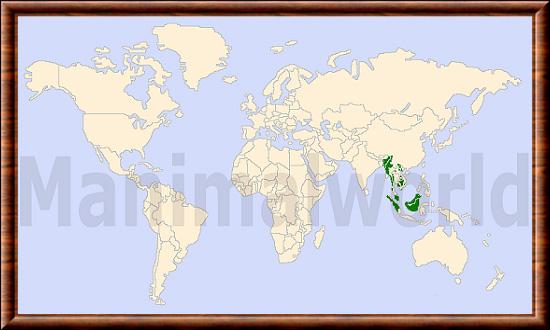
L’aire de répartition de l’ours malais couvre l’Asie du Sud-Est continentale et insulaire. Sur le continent, l’espèce se rencontre ou s’est rencontrée dans le nord-est de l’Inde, au Bangladesh, en Birmanie, en Thaïlande, au Laos, au Cambodge, au Vietnam et dans le sud de la Chine, notamment au Yunnan, ainsi que dans la péninsule malaise. Elle occupe aussi les grandes îles de la Sonde, Sumatra et Bornéo, et se trouve sur ce dernier territoire en Indonésie, en Malaisie et à Brunei. Elle a disparu de plusieurs régions marginales et ne subsiste en Chine, au Bangladesh et dans l’est de l’Inde que sous forme de petites populations très fragmentées, voire douteuses.
Le biotope typique est la forêt tropicale humide de plaine et de basse montagne, en particulier les forêts de diptérocarpacées, mais l’espèce fréquente aussi les forêts de montagne et, localement, les forêts secondaires, les mangroves et certaines forêts marécageuses. On l’a signalée à des altitudes dépassant ponctuellement deux mille mètres, bien que sa densité soit la plus élevée dans les basses terres où abondent les fruits et les insectes. Le facteur déterminant semble moins l’altitude que la présence d’une forêt mature, riche en grands arbres fructifères, en arbres creux propres à la nidification et en bois mort où se développent termites et coléoptères.
La structure de ce milieu a une incidence directe sur la distribution des populations. Les forêts d’Asie du Sud-Est présentent des fructifications irrégulières, parfois massives, parfois quasi nulles pendant plusieurs mois, et les ours doivent parcourir de vastes territoires pour y faire face. Les domaines vitaux, mesurés par télémétrie, sont de l’ordre de la dizaine de kilomètres carrés, avec une grande variabilité selon les sites, le sexe et l’abondance des ressources. L’espèce est ainsi sensible à la fragmentation, car de petits massifs isolés ne suffisent pas à fournir une alimentation régulière.
La tolérance de l’ours malais aux milieux dégradés reste débattue. Des individus fréquentent des forêts exploitées de façon sélective, voire des lisières de plantations de palmiers à huile ou de cocotiers, où ils cherchent des coeurs de palmes et des fruits, mais ces milieux n’offrent guère de sites de repos ni de ressources diversifiées. Les études sur la sélection de l’habitat montrent que les forêts primaires et les forêts peu perturbées demeurent les plus utilisées. La répartition actuelle est donc un archipel de blocs forestiers dont la connectivité conditionne l’avenir de l’espèce, notamment dans les paysages de Bornéo et de Sumatra, où les massifs intacts reculent rapidement.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)ALIMENTATION
L’ours malais est omnivore avec une forte tendance insectivore et frugivore, et son régime varie considérablement selon la saison, le site et la disponibilité des ressources. Les fruits forment la base de l’alimentation lorsque la forêt fructifie, en particulier les figues, qui jouent un rôle de ressource de repli lorsque les autres fruits manquent, ainsi que les fruits de diptérocarpacées, de fagacées et de nombreuses autres familles forestières. Cet ours s’adapte rapidement aux pics de fructification, qu’il exploite intensément, parfois en se déplaçant sur de longues distances pour localiser les arbres chargés.
Entre ces périodes d’abondance, les invertébrés prennent le relais. Les termites, les fourmis, les abeilles sauvages, ainsi que les larves de coléoptères, constituent la ressource la plus régulière. L’ours malais déchire l’écorce et le bois mort à l’aide de ses griffes, creuse les termitières, puis prélève les insectes avec sa langue. Le miel est très recherché : l’animal grimpe haut dans les arbres pour atteindre des nids d’abeilles géantes, malgré les piqûres. Cette attirance pour le miel est à l’origine du nom d’"ours à miel" parfois employé en Asie du Sud-Est.
Des vertébrés viennent compléter le régime de façon opportuniste. L’ours consomme des petits rongeurs, des lézards, des oiseaux, des oeufs, et parfois des charognes, mais ces proies restent marginales en proportion. Il se nourrit aussi du coeur de certains palmiers, ce qui peut le mettre en conflit avec les planteurs lorsqu’il s’attaque à des cocotiers ou à des palmiers à huile, et il exploite parfois les cultures de fruits situées en lisière de forêt.
Cette plasticité alimentaire a une dimension écologique remarquable. Les ours malais avalent de nombreuses graines intactes et participent ainsi à la dissémination de nombreuses espèces d’arbres, y compris des espèces à grosses graines que peu d’autres animaux peuvent transporter. Leur action de déchiquetage du bois mort, quant à elle, accélère la décomposition et modifie la structure des habitats de nombreux invertébrés. Contrairement aux ours des régions tempérées, l’ours malais ne stocke pas de graisse en vue d’une hibernation, puisque la forêt tropicale n’impose pas de saison hivernale. En revanche, il subit les conséquences de perturbations climatiques comme celles associées à El Niño, qui peuvent provoquer des années sans fructification et un amaigrissement visible. En période de disette, les ours élargissent leurs déplacements, consomment des ressources de moindre qualité et peuvent entrer plus fréquemment en contact avec les cultures.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)REPRODUCTION
La biologie de la reproduction de l’ours malais demeure l’une des moins documentées parmi les ursidés, en raison de la discrétion de l’espèce et de la difficulté de suivre les individus en forêt dense. Une grande part de nos connaissances provient d’animaux captifs et de quelques suivis de terrain. En l’absence de saison hivernale marquée, il semble que la reproduction ne soit pas strictement saisonnière : des naissances sont signalées tout au long de l’année dans plusieurs régions, même si des pics peuvent coïncider avec des périodes de forte fructification.
La maturité sexuelle serait atteinte vers trois à quatre ans. Les mâles et les femelles se rencontrent pour s’accoupler lors de rapprochements qui peuvent durer plusieurs jours, durant lesquels les partenaires jouent, se poursuivent et se lèchent, comportement inhabituel chez des ours généralement solitaires. Après la fécondation, l’espèce présenterait une implantation différée de l’embryon, ce qui expliquerait la grande variabilité de la durée apparente de gestation observée en captivité, comprise entre un peu plus de trois mois et près de six mois. La question reste toutefois discutée, faute de données précises sur les mécanismes hormonaux.
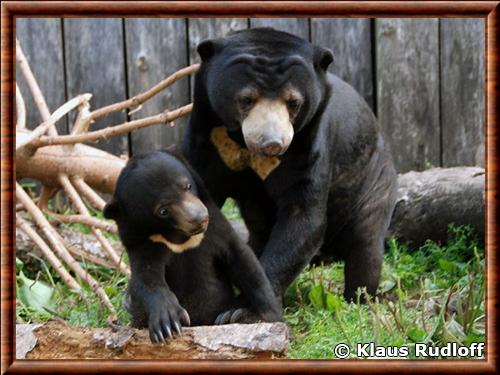
La mise bas a lieu dans un abri, souvent un tronc creux, une cavité sous des racines ou un nid aménagé dans un arbre. La portée comprend le plus souvent un ou deux petits, parfois trois, dont le poids à la naissance est très faible, de l’ordre de trois cents grammes, soit une fraction minime de celui de la mère. Ils naissent aveugles, couverts d’un pelage fin et clairsemé, et ouvrent les yeux au bout de quelques semaines. La tache pectorale se dessine progressivement et prend d’abord une teinte pâle.
Les jeunes restent très longtemps avec leur mère, parfois près de deux ans, période pendant laquelle elle leur enseigne à repérer les ressources, à grimper et à éviter les dangers. Le sevrage intervient progressivement, vers dix-huit mois, mais les liens peuvent se prolonger. Cette longue dépendance, combinée à un intervalle entre portées assez important et à un faible nombre de petits, confère à l’espèce un taux de reproduction lent, ce qui la rend vulnérable à une mortalité élevée liée aux activités humaines. En captivité, des individus ont atteint plus de trente ans, tandis que la longévité dans la nature est mal connue, mais probablement plus courte du fait de la prédation et de la chasse. Les éléments de la reproduction de l’ours malais sont donc encore largement lacunaires, et leur étude fine constitue une priorité de recherche pour la conservation.
© Klaus Rudloff - BioLib
 All rights reserved (Tous droits réservés)
COMPORTEMENT
L’ours malais est un animal essentiellement solitaire, hormis les liens entre la mère et ses petits et les brefs rapprochements des partenaires en période d’accouplement. Il est actif de jour comme de nuit, mais son rythme dépend étroitement de la pression humaine : dans les zones peu perturbées, il peut être surtout diurne, alors que dans les zones fréquentées il devient plus nocturne, ce qui illustre une grande plasticité comportementale. Les mesures effectuées à l’aide de colliers émetteurs montrent des déplacements quotidiens de quelques kilomètres, plus longs lorsque les ressources sont dispersées.
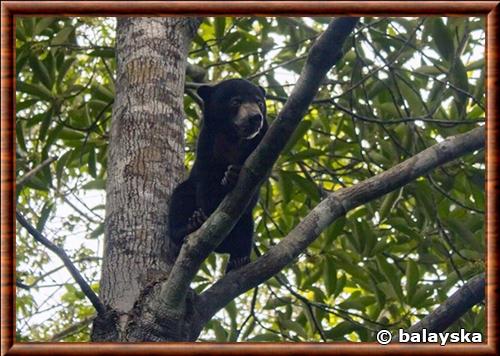
La vie arboricole occupe une place majeure. L’ours malais grimpe avec aisance, accède aux fruits et aux nids d’abeilles situés dans la canopée et passe de longues heures sur de grosses branches, où il construit des plates-formes de repos faites de rameaux cassés. Ces structures lui servent à dormir, à se reposer au soleil et probablement à surveiller les alentours. Il utilise aussi des cavités dans des troncs ou sous des racines comme gîtes de repos et d’abri, et change de lieu fréquemment.
Il se montre généralement timide et évite l’homme, mais peut devenir défensif s’il se sent surpris ou acculé, notamment lorsqu’une mère est accompagnée de petits. Sa petite taille ne doit pas faire oublier la puissance de ses griffes et de ses mâchoires, et des attaques ont été rapportées, le plus souvent dans un contexte de rencontre soudaine. Les ours utilisent des griffures sur les troncs, des marques d’écorce et des odeurs pour signaler leur présence, mais le détail de leur communication reste peu compris. On sait toutefois qu’ils émettent des vocalisations variées, des grognements, des soupirs et des cris aigus chez les jeunes, ainsi que des expressions faciales assez mobiles, favorisées par l’absence de poils sur le museau et la mobilité des lèvres.
Le comportement social s’exprime différemment en captivité, où des ours peuvent être gardés par groupes, avec des jeux, des postures et des interactions complexes. Les observations en nature suggèrent que les domaines vitaux se chevauchent partiellement, sans territorialité stricte, et que les individus évitent les rencontres plus qu’ils ne les combattent. Dans l’ensemble, le mode de vie de l’ours malais associe une grande souplesse, liée à l’imprévisibilité des ressources, et une discrétion qui rend l’observation directe très rare.
© Balayska - iNaturalist
 CC-BY-NC (Certains droits réservés)
PRÉDATION
Les adultes sont peu exposés à la prédation grâce à leur agilité, à leur vigilance et à la puissance de leurs griffes, mais ils ne sont pas à l’abri. Les grands félins de la région, le tigre et le léopard, sont les principaux prédateurs potentiels. Des restes d’ours malais ont été retrouvés dans les excréments de tigres de Sumatra ainsi que dans ceux de la péninsule malaise, ce qui montre que ces prédateurs s’en nourrissent à l’occasion. La panthère nébuleuse, plus petite, représente plutôt une menace pour les jeunes, de même que le dhole, canidé social susceptible de s’attaquer à des individus affaiblis.
Un autre prédateur redoutable est le python réticulé, grand serpent constricteur capable de s’en prendre à des proies de taille considérable. Un cas documenté à Bornéo a montré un ours malais capturé et tué par un python de grande taille, événement rare, mais qui témoigne d’une prédation réelle, surtout sur les jeunes ou sur des individus affaiblis. Les petits sont évidemment les plus vulnérables, tant que leur mère n’est pas en mesure de les défendre ou lorsqu’elle s’absente pour chercher de la nourriture.
Le véritable prédateur de l’espèce reste toutefois l’être humain, bien plus redoutable que tous les carnivores naturels. Les prélèvements par la chasse, le piégeage et les destructions liées aux conflits avec les agriculteurs dépassent largement l’effet de la prédation naturelle, qui a toujours eu un impact limité sur les effectifs. Dans de nombreux secteurs, la disparition des grands félins, du fait elle aussi de la chasse et de la perte d’habitat, a même supprimé une partie de cette pression naturelle sans qu’elle ait été compensée par une augmentation de la population d’ours. Cet exemple illustre bien la façon dont les menaces anthropiques éclipsent aujourd’hui les relations trophiques naturelles dans les forêts d’Asie du Sud-Est.
© Simon van der Meulen - iNaturalist
CC-BY-NC (Certains droits réservés)MENACES
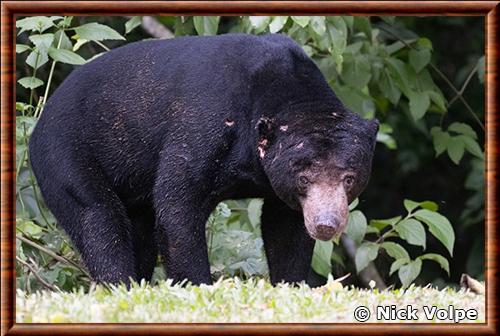
La menace principale pesant sur l'ours malais est la perte et la fragmentation de l’habitat forestier. L’Asie du Sud-Est présente l’un des taux de déforestation les plus élevés du monde, sous l’effet de l’exploitation forestière, de l’expansion de l’agriculture industrielle, de la conversion en plantations de palmiers à huile, de caoutchouc et d’acacias, ainsi que de l’aménagement d’infrastructures. À Bornéo, une part importante des forêts de basse altitude a disparu en quelques décennies, tandis que Sumatra a perdu une grande proportion de son couvert forestier. Pour une espèce dépendante de grands arbres fructifères et de bois mort, cette transformation est dramatique, car les plantations n’offrent pas les ressources nécessaires.
Les incendies forestiers, souvent liés à la préparation des terres et amplifiés par les sécheresses associées à El Niño, aggravent la situation. Ils détruisent directement les arbres fructifères et perturbent durablement la fructification, ce qui provoque des carences alimentaires. Les exploitations forestières sélectives, même lorsqu’elles ne détruisent pas totalement la forêt, éliminent les grands arbres creux et réduisent les gîtes disponibles.
La chasse constitue la seconde grande menace. Les ours sont tués pour leur vésicule biliaire, dont la bile est utilisée dans la médecine traditionnelle asiatique, pour leur viande, pour leurs griffes et leurs dents vendues comme ornements ou amulettes, et pour alimenter le commerce d’animaux de compagnie. Les jeunes sont capturés après l’abattage de leur mère et vendus sur les marchés, où ils sont souvent maintenus dans de mauvaises conditions. Les pièges à câble, posés à l’origine pour d’autres animaux, blessent ou tuent de nombreux ours, causant des amputations qui compromettent leur survie.
Les conflits avec les agriculteurs complètent le tableau. Lorsque la forêt recule, les ours s’attaquent aux cocotiers, aux palmiers à huile, aux fruits ou aux ruches et sont alors tués en représailles ou par prévention. La détention en captivité, parfois dans des fermes à bile où les animaux sont soumis à des prélèvements répétés, pose également un grave problème de bien-être animal.
Ces menaces s’additionnent, et le faible taux de reproduction de l’espèce limite sa capacité à compenser les pertes. Les estimations de tendances sont difficiles en raison de la discrétion de l’espèce, mais les évaluations internationales concluent à un déclin marqué, estimé à plus d’un tiers sur trois générations. Le changement climatique, par ses effets sur la phénologie des fructifications, pourrait encore aggraver la situation dans les décennies à venir.
© Nick Volpe - iNaturalist
CC-BY-NC (Certains droits réservés)CONSERVATION
L’ours malais est classé "Vulnérable" (VU) sur la Liste rouge de l'IUCN, en raison d’un déclin estimé à plus de 30% sur une période d’environ trente ans. Il figure à l’Annexe I de la CITES, ce qui interdit le commerce international de l’animal et de ses parties à des fins commerciales. Dans la plupart des pays de son aire de répartition, l’espèce est légalement protégée, mais l’application de ces lois reste très inégale, et le commerce illégal persiste, notamment dans les zones frontalières.
Les actions de conservation reposent sur plusieurs axes. Le premier est la protection des forêts, au moyen d’aires protégées, de corridors écologiques et de pratiques d’exploitation à moindre impact. Les grands massifs de Bornéo, de Sumatra et de la péninsule malaise, ainsi que les complexes forestiers transfrontaliers du continent, sont considérés comme prioritaires. Le deuxième axe est la lutte contre le braconnage et le commerce illégal, par la surveillance, le renforcement de la législation et la sensibilisation des consommateurs. Le troisième axe est la réduction des conflits entre humains et ours, grâce à des mesures de prévention et à l’implication des communautés locales.
Des centres de sauvetage et de réhabilitation, notamment à Sabah, accueillent des ours saisis ou orphelins, les soignent et, lorsque c’est possible, préparent leur retour à la nature, tandis que d’autres programmes consacrent leurs efforts à l’éducation du public et à la recherche. Ces structures jouent un rôle précieux de sensibilisation, même si la réintroduction d’ours élevés par l’homme reste délicate. Le Groupe de spécialistes des ours de l’IUCN, ainsi qu’un réseau d’experts consacré à l’espèce, coordonne les priorités de recherche et a contribué à l’élaboration de plans d’action régionaux.
Les besoins en connaissances demeurent considérables. Des méthodes comme les pièges photographiques, l’identification individuelle fondée sur la marque pectorale et la génétique non invasive améliorent progressivement l’estimation des densités et des tendances. Des études sur la phénologie des forêts et sur la résilience de l’espèce aux perturbations climatiques sont également nécessaires. À terme, la conservation de l’ours malais dépend de la capacité des pays concernés à concilier développement économique et maintien de grands massifs forestiers, ainsi que de la mobilisation des financements, de l’engagement des communautés locales et d’une meilleure coopération transfrontalière.
 CC-BY-NC (Certains droits réservés)
TAXONOMIE
L’ours malais est connu des Européens depuis le début du XIXe siècle. Il a été décrit scientifiquement en 1821 par Thomas Stamford Raffles, alors lieutenant-gouverneur de Bencoolen à Sumatra, qui l’a nommé Ursus malayanus à partir d’un animal observé dans l’île et qu’il avait gardé vivant. Cette description figure dans un catalogue des collections zoologiques réunies à Sumatra pour le compte de la Compagnie des Indes orientales, publié dans les Transactions de la Société linnéenne de Londres. Raffles souligna d’emblée les particularités de l’animal, sa petite taille, sa fourrure lisse, sa langue longue et sa tache pectorale, qui le distinguaient clairement de l’ours noir d’Asie ou de l’ours lippu.
En 1825, le naturaliste américain Thomas Horsfield, qui travaillait lui aussi sur la faune de l’Asie du Sud-Est, jugea les caractères de cet ours suffisamment distincts pour lui accorder un genre à part. Il créa le genre Helarctos, dont le nom, formé à partir de termes grecs signifiant "soleil" et "ours", fait référence à la marque claire de la poitrine, interprétée comme un soleil levant. Dans le même ouvrage, il décrivit un ours de Bornéo sous le nom d’Ursus euryspilus, nom qui allait par la suite être rattaché à l’espèce de Raffles. Ces débuts témoignent d’une période où les ours étaient classés surtout d’après des critères morphologiques et où les spécimens étaient rares.
Le statut du genre Helarctos a longtemps fait l’objet de discussions. Certains auteurs ont regroupé l’ours malais avec les autres espèces dans un genre Ursus très large, tandis que d’autres ont maintenu Helarctos comme genre distinct, voire l’ont rapproché de l’ours lippu, également insectivore, en raison de similitudes dans l’adaptation à la myrmécophagie. Au XXe siècle, les systématiciens ont généralement reconnu la distinction du genre, fondée sur la morphologie crânienne et dentaire, sur la petite taille et sur les caractéristiques de la fourrure, même si les relations avec les autres lignées restaient peu claires.
Les analyses moléculaires, menées à partir de la fin du XXe siècle, ont apporté des réponses plus précises. Les études fondées sur l’ADN mitochondrial et nucléaire placent l’ours malais parmi les lignées d’ours actuelles à une position basale par rapport au groupe de l’ours noir d’Asie et des ours bruns et ours polaires, mais distincte de celle de l’ours lippu, ce qui suggère que les convergences avec ce dernier résultent d’une évolution parallèle liée au régime alimentaire. D’après plusieurs reconstitutions, la divergence remonterait au Miocène supérieur ou au début du Pliocène, période de diversification rapide des ursidés. Les travaux fondés sur des génomes mitochondriaux, qui incluent des ours éteints, confirment ce schéma général d’une radiation relativement rapide, même si les datations varient selon les méthodes.
Ces résultats ont conduit la majorité des auteurs à maintenir Helarctos malayanus comme espèce unique du genre, dans la sous-famille des Ursinae. Le nom Helarctos a longtemps été employé de façon constante dans la littérature, y compris dans les références modernes sur les carnivores. Quelques fossiles du Pléistocène d’Asie orientale, attribués au genre ou à des formes proches, montrent que la lignée était plus largement répartie qu’aujourd’hui, notamment en Chine méridionale, avant le recul de son aire de distribution. L’histoire de la taxonomie de l’ours malais illustre ainsi les difficultés de classification d’une espèce rare, longtemps connue par quelques spécimens et dont la place dans l’arbre des ursidés n’a été clarifiée que grâce aux méthodes moléculaires.
L'analyse de la variation géographique et morphologique de l'ours malais a conduit à la reconnaissance traditionnelle de deux sous-espèces distinctes en fonction de leur répartition insulaire ou continentale.
- Helarctos malayanus malayanus : est la sous-espèce nominale. Elle regroupe les populations continentales s'étendant de l'Inde et de la péninsule malaise jusqu'aux habitats de l'île de Sumatra. Cette forme continentale et sumatranaise se caractérise par des dimensions corporelles et crâniennes proportionnellement plus développées que celles observées chez sa cousine insulaire.
- Helarctos malayanus euryspilus : elle englobe spécifiquement les populations endémiques de l'île de Bornéo. Cette entité bornéenne se distingue principalement par une taille globale nettement plus réduite, un crâne proportionnellement plus petit mais pourvu de dents relativement robustes, ainsi qu'une morphologie générale adaptée au particularisme insulaire de la forêt tropicale bornéenne.
Bien que les marques thoraciques caractéristiques de la poitrine présentent une grande variabilité individuelle au sein de l'ensemble des populations sans constituer un marqueur sous-spécifique fiable, la distinction biométrique entre les deux sous-espèces demeure validée par les autorités de référence taxonomique.
CLASSIFICATION
| Nom commun | Ours malais |
| Autres noms | Ours des cocotiers Bruan |
| English name | Sun bear Honey bear |
| Español nombre | Oso malayo |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Caniformia |
| Famille | Ursidae |
| Sous-famille | Ursinae |
| Genre | Helarctos |
| Nom binominal | Helarctos malayanus |
| Décrit par | Thomas Stamford Raffles |
| Date | 1821 |
Satut IUCN |  |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Raffles, T. S. (1821). Descriptive catalogue of a zoological collection, made on account of the Honourable East India Company, in the island of Sumatra and its vicinity. Transactions of the Linnean Society of London, 13, 239–274.
Servheen, C., Herrero, S. & Peyton, B. (éds.) (1999). Bears: Status Survey and Conservation Action Plan. IUCN/SSC Bear and Polar Bear Specialist Groups, Gland et Cambridge.
Augeri, D. M. (2005). On the biogeographic ecology of the Malayan sun bear. Thèse de doctorat, Université de Cambridge.
Wong, S. T., Servheen, C. W. & Ambu, L. (2004). Home range, movement and activity patterns, and bedding sites of Malayan sun bears Helarctos malayanus in the rainforest of Borneo. Biological Conservation, 119, 169–181.
Scotson, L., Fredriksson, G., Augeri, D., Cheah, C., Ngoprasert, D. & Wai-Ming, W. (2017). Helarctos malayanus. The IUCN Red List of Threatened Species 2017: e.T9760A45033547.
Wong, S. T., Servheen, C. W. & Ambu, L. (2002). Food habits of Malayan sun bears in lowland tropical forests of Borneo. Ursus, 13, 127–136.
Fredriksson, G. M., Wich, S. A. & Trisno (2006). Frugivory in sun bears (Helarctos malayanus) is linked to El Niño-related fluctuations in fruiting phenology, East Kalimantan, Indonesia. Biological Journal of the Linnean Society, 89, 489–508.
Steinmetz, R., Garshelis, D. L., Chutipong, W. & Seuaturien, N. (2011). The shared preference niche of sympatric Asiatic black bears and sun bears in a tropical forest mosaic. PLoS ONE, 6(1), e14509.
Fredriksson, G. M. (2005). Ecology and behaviour of the Malayan sun bear in East Kalimantan, Indonesian Borneo. Thèse de doctorat, Université d’Amsterdam.
Wong, S. T., Servheen, C., Ambu, L. & Norhayati, A. (2005). Impacts of fruit production on Malayan sun bears and bearded pigs in lowland tropical forest of Sabah, Malaysia. Journal of Tropical Ecology, 21, 627–639.
Wong, S. T. (2002). Ecology of Malayan sun bears (Helarctos malayanus) in the lowland tropical rainforest of Sabah, Malaysia. Thèse de doctorat, Université du Montana.
Ngoprasert, D., Reed, D. H., Steinmetz, R. & Gale, G. A. (2012). Density estimation of Asian bears using photographic capture–recapture sampling based on chest marks. Ursus, 23(2), 117–133.
Fredriksson, G. M. (2005). Predation on sun bears by reticulated python in East Kalimantan, Indonesian Borneo. The Raffles Bulletin of Zoology, 53(1), 165–168.
Meijaard, E., Sheil, D., Nasi, R., Augeri, D., Rosenbaum, B., Iskandar, D., et al. (2005). Life after Logging: Reconciling Wildlife Conservation and Production Forestry in Indonesian Borneo. CIFOR, Bogor.
Gaveau, D. L. A., Sloan, S., Molidena, E., Yaen, H., Sheil, D., Abram, N. K., et al. (2014). Four decades of forest persistence, clearance and logging on Borneo. PLoS ONE, 9(7), e101654.
Fredriksson, G. M., Danielsen, L. S. & Swenson, J. E. (2007). Impacts of El Niño related drought and forest fires on sun bear fruit resources in lowland dipterocarp forest of East Borneo. Biodiversity and Conservation, 16, 1823–1838.
Foley, K. E., Stengel, C. J. & Shepherd, C. R. (2011). Pills, powders, vials and flakes: the bear bile trade in Asia. TRAFFIC Southeast Asia, Petaling Jaya.
Vijay, V., Pimm, S. L., Jenkins, C. N. & Smith, S. J. (2016). The impacts of oil palm on recent deforestation and biodiversity loss. PLoS ONE, 11(7), e0159668.
Horsfield, T. (1825). Zoological Researches in Java, and the Neighbouring Islands. Kingsbury, Parbury & Allen, Londres.
Pocock, R. I. (1941). The Fauna of British India, including Ceylon and Burma. Mammalia, vol. 2: Carnivora. Taylor & Francis, Londres.
Yu, L., Li, Q.-W., Ryder, O. A. & Zhang, Y.-P. (2004). Phylogeny of the bears (Ursidae) based on nuclear and mitochondrial genes. Molecular Phylogenetics and Evolution, 32, 480–494.
Meijaard, E. (2004). Craniometric differences among Malayan sun bears (Ursus malayanus); evolutionary and taxonomic implications. The Raffles Bulletin of Zoology, 52(2), 665–672.
Krause, J., Unger, T., Noçon, A., Malaspinas, A.-S., Kolokotronis, S.-O., Stiller, M., et al. (2008). Mitochondrial genomes reveal an explosive radiation of extinct and extant bears near the Miocene-Pliocene boundary. BMC Evolutionary Biology, 8, 220.