
Raton laveur (Procyon lotor)
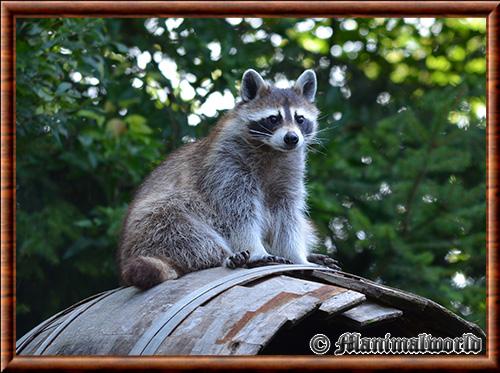
Le raton laveur (Procyon lotor) est un mammifère omnivore de taille moyenne appartenant à la famille des Procyonidae. Reconnaissable à son masque facial noir cerné de blanc et à sa queue annelée aux teintes alternativement sombres et claires, il figure parmi les espèces sauvages les plus aisément identifiables de la faune nord-américaine. Son nom vernaculaire, hérité d'une mauvaise interprétation des usages algonquins, évoque son comportement de "lavage" des aliments, comportement en réalité lié à la stimulation sensorielle de ses pattes antérieures en milieu aquatique. Doté d'une plasticité écologique et comportementale remarquable, le raton laveur s'est imposé comme un modèle d'étude en biologie de la conservation, en écologie urbaine et en parasitologie. Son expansion géographique spectaculaire — incluant une implantation réussie en Europe et au Japon à la suite d'introductions volontaires ou accidentelles — en fait aujourd'hui une espèce invasive préoccupante dans de nombreuses régions du monde. Le raton laveur est également appelé Raton laveur commun.

© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
 DESCRIPTION
Le raton laveur présente une morphologie robuste et trapu, caractéristique des procyonidés nord-américains. Les adultes mesurent généralement entre 41 et 71 centimètres de longueur corporelle, la queue rajoutant 19 à 40 centimètres supplémentaires. La masse corporelle varie considérablement selon le sexe, la saison et la latitude : elle oscille en moyenne entre 3,5 et 9 kilogrammes, mais des individus exceptionnels du nord du continent peuvent dépasser 15 kilogrammes, notamment en automne après une phase d'hyperphagie pré-hivernale. Les mâles sont en moyenne 15 à 20 % plus lourds que les femelles.
Le pelage est dense, composé d'un sous-poil court et laineux surmonté de longs poils de jarre aux reflets grisâtres à brunâtres. Le dos présente une coloration gris sel poivre, souvent plus sombre le long de la ligne dorsale. Le masque facial, élément le plus distinctif de l'espèce, consiste en une large plage noire entourant les deux yeux, délimitée par des bandes blanches ou crème sur le front et sur le museau. Cette structure a longtemps été interprétée comme une adaptation à la réduction de l'éblouissement en milieu lumineux, bien que des études récentes suggèrent également un rôle dans la communication intraspécifique.
Les membres antérieurs sont remarquablement agiles : les mains, munies de cinq doigts non rétractiles, possèdent une innervation tactile exceptionnellement développée. La densité de terminaisons nerveuses cutanées au niveau des coussinets palmaires est l'une des plus élevées parmi les carnivores, rendant ces appendices extrêmement sensibles aux textures, formes et températures. Cette caractéristique est à l'origine du comportement de "doigitage" sous l'eau, longtemps interprété à tort comme du lavage alimentaire. Les pattes postérieures, plus robustes, permettent une locomotion plantigrade caractéristique.
La formule dentaire, 3/3 incisives, 1/1 canine, 4/4 prémolaires, 2/2 molaires (I 3/3, C 1/1, PM 4/4, M 2/2), reflète le régime omnivore de l'espèce. Les molaires à surface tuberculeuse sont adaptées au broyage d'aliments variés. Les canines, bien développées, servent à la préhension des proies et à la défense.
Les yeux, à pupille verticalement ovale, assurent une vision crépusculaire et nocturne efficace, bien que les performances en vision des couleurs demeurent limitées comparativement aux primates. L'ouïe est fine, couvrant une plage fréquentielle allant de quelques centaines de hertz à plus de 85 kHz, ce qui permet la détection de proies par leurs déplacements dans le substrat. La morphologie générale du raton laveur est donc le produit d'une évolution vers un régime opportuniste et généraliste, exploitant une large gamme de niches alimentaires et écologiques.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)HABITAT
L'aire de répartition native du raton laveur s'étend sur la quasi-totalité du continent nord-américain, du sud du Canada jusqu'au Panama, englobant la majeure partie des États-Unis ainsi que le Mexique. Au Canada, l'espèce est présente dans toutes les provinces méridionales, avec une limite septentrionale dictée par la rigueur des hivers et la disponibilité alimentaire hivernale. En Amérique centrale, les populations occupent principalement les basses terres côtières et les plaines alluviales jusqu'à l'isthme panaméen, où l'espèce entre en contact avec le raton crabier et le raton de Cozumel.
Au-delà de son aire native, le raton laveur a été introduit, volontairement ou accidentellement, dans de nombreuses régions du monde. En Europe, les premières introductions documentées remontent aux années 1930 en Allemagne, notamment avec un lâcher expérimental en 1934 dans le land de Hesse. Depuis, la population européenne a connu une expansion fulgurante : on estimait en 2020 plus d'un million d'individus en Allemagne, et des populations reproductives ont été signalées en France, Belgique, Pays-Bas, Luxembourg, République tchèque, Pologne et dans d'autres pays limitrophes. Au Japon, des introductions liées au commerce des animaux de compagnie, notamment suite à la popularité du dessin animé Rascal le raton laveur dans les années 1970, ont conduit à l'établissement de populations férales dans de nombreuses préfectures.
En termes d'habitat, le raton laveur commun se distingue par une plasticité écologique exceptionnelle. À l'état sauvage, il affectionne les zones de transition entre forêts feuillues ou mixtes et milieux humides — bordures de cours d'eau, marécages, ripisylves et lisières forestières constituent ses habitats de prédilection. La présence permanente d'eau douce à proximité du domaine vital semble être la contrainte écologique la plus déterminante pour la structuration des populations. Les milieux agricoles lui conviennent également parfaitement, notamment les paysages bocagers mêlant champs cultivés et haies arborées.
En altitude, l'espèce se rencontre plus rarement au-dessus de 1 500 mètres, bien que des observations ponctuelles aient été réalisées dans les zones montagneuses des Appalaches et des Rocheuses. Les déserts arides constituent la principale contrainte climatique limitant son expansion vers le sud-ouest du continent nord-américain. La disponibilité de sites d'abri (terriers, cavités arborées, anfractuosités rocheuses) demeure également un facteur structurant important pour la sélection de l'habitat à l'échelle locale.

Répartition actuelle - Zones d'introduction
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)ALIMENTATION
Le raton laveur possède un régime alimentaire omnivore d'une diversité remarquable, qualifié de généraliste et d'opportuniste par les écologues. La composition exact de son bol alimentaire varie de manière très dynamique en fonction de la disponibilité saisonnière des ressources, de la structure géographique du milieu et du niveau d'impact humain. Au printemps, la nourriture consommée se compose très majoritairement de matières animales riches en protéines, indispensables pour reconstituer les réserves métaboliques épuisées durant la période hivernale. L'animal capture alors activement des invertébrés aquatiques et terrestres tels que des écrevisses, des mollusques, des insectes, des vers de terre, mais aussi de petits vertébrés comme des amphibiens, des poissons, des rongeurs et des oeufs d'oiseaux nichant au sol.
Lorsque l'été s'installe et se prolonge jusqu'à l'automne, la part végétale prend une importance considérable dans son alimentation quotidiennes. Le raton laveur consomme alors de grandes quantités de fruits sauvages, de baies, de noix, de faînes, de glands et de graines. Dans les zones agricoles, il peut occasionner des dégâts visibles dans les cultures de maïs doux, de céréales ou de vergers fruitiers, dont il raffole particulièrement. La recherche active de ces aliments riches en glucides et en lipides s'intensifie à la fin de la saison chaude pour lui permettre d'accumuler une épaisse couche d'adiposité sous-cutanée avant les grands froids.
En milieu urbain ou périurbain, le raton laveur modifie profondément ses habitudes d'approvisionnement en tirant parti des ressources anthropiques. Les poubelles domestiques, les composteurs, les conteneurs de restauration, les croquettes pour animaux de compagnie laissées à l'extérieur et les déchets de voirie constituent une source de nourriture abondante, prévisible et très énergétique. Cette nourriture facile d'accès réduit les déplacements quotidiens de l'animal et augmente significativement la capacité d'accueil des territoires urbains. Grâce à la coordination exceptionnelle de ses doigts, le raton laveur parvient à déverrouiller la plupart des couvercles de poubelles, démontrant un opportunisme cognitif et comportemental tout à fait exceptionnel dans la recherche de ses repas.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)REPRODUCTION
La biologie reproductive du raton laveur commun est bien documentée et présente des caractéristiques typiques des mammifères saisonniers tempérés, avec une organisation sociale fondée sur la polygynie. La saison de reproduction, induite par l'allongement photopériodique, débute entre janvier et mars dans la majeure partie de l'aire de répartition nord-américaine, avec un léger décalage temporel selon la latitude : les populations méridionales entrant en chaleur plus tôt que celles du nord. En Europe, la phénologie reproductive suit un calendrier similaire, bien que de légères variations locales aient été rapportées.
Les femelles sont monoœstriennes et présentent une réceptivité sexuelle brève, de l'ordre de trois à six jours. Durant cette période, elles sont activement recherchées par plusieurs mâles, qui peuvent parcourir des distances importantes au-delà de leur domaine vital habituel pour localiser les femelles en chaleur. Les combats entre mâles rivaux, bien qu'existants, sont généralement limités à des interactions de parade, vocalisations et postures agonistiques. La structure sociale des mâles s'assouplit durant cette période : les groupes fraternels observés en dehors de la saison sexuelle se fragmentent temporairement.
La gestation dure en moyenne 63 jours (de 60 à 73 jours selon les sources). Les portées comprennent généralement deux à cinq petits, avec une moyenne de 3,5 par portée dans les populations nord-américaines. Des portées plus importantes (jusqu'à sept petits) ont été occasionnellement signalées. Les naissances interviennent donc principalement entre avril et juin. La taille des portées peut varier en fonction de l'âge de la mère, de la disponibilité alimentaire de la saison précédente et de la latitude.
À la naissance, les ratonneaux sont nidicoles, pesant entre 60 et 75 grammes, les yeux et les oreilles fermés. Le masque facial est cependant déjà ébauché, visible sous forme de pigmentation cutanée. Le pelage initial est court et laineux. Les yeux s'ouvrent entre le 18e et le 24e jour, et l'oreille externe devient fonctionnelle vers la quatrième semaine. Le sevrage s'effectue autour de la 16e semaine, bien que les jeunes commencent à consommer des aliments solides dès la cinquième semaine lors des sorties accompagnées par la mère. La dispersion des jeunes mâles intervient généralement à l'automne suivant, tandis que les femelles peuvent demeurer à proximité du domaine vital maternel.
La maturité sexuelle est atteinte dès la première année pour les femelles dans les populations à forte productivité alimentaire, ou vers la deuxième année dans des conditions moins favorables. Les mâles atteignent la maturité sexuelle vers un an, mais leur participation effective à la reproduction est souvent retardée par la compétition avec des individus plus âgés et plus dominants. La longévité en milieu naturel excède rarement cinq ans, bien que des individus captifs aient vécu jusqu'à vingt ans. La mortalité juvénile la première année est élevée, pouvant dépasser 50 % dans certaines populations.

© Virginia State Parks staff - Wikimedia Commons
 CC-BY (Certains droits réservés)
COMPORTEMENT
Le comportement du raton laveur commun est marqué par une flexibilité remarquable à tous les niveaux : organisation spatiale, activité temporelle, organisation sociale et répertoire cognitif. L'espèce est fondamentalement nocturne à crépusculaire, avec un pic d'activité situé dans les heures suivant le coucher du soleil et précédant l'aube. Toutefois, des activités diurnes sont fréquemment observées, notamment chez les femelles allaitantes ou dans des contextes anthropiques où les perturbations nocturnes sont importantes.
L'organisation sociale du raton laveur commun ne correspond ni au schéma strictement solitaire ni à une vie en groupe structuré au sens éthologique du terme. Les femelles adultes défendent des domaines vitaux individuels, dont la superficie varie de quelques hectares en milieu urbain à plusieurs centaines d'hectares en milieu rural peu productif. Les mâles adultes occupent des domaines plus vastes, chevauchant partiellement ceux de plusieurs femelles. Les jeunes mâles de la même cohorte ou fraternelle peuvent former des groupes de cohabitation temporaires qui représentent un avantage compétitif lors des accès à la ressource.
Le comportement dit de "lavage" des aliments, à l'origine de son nom vernaculaire français, a fait l'objet d'une réévaluation scientifique approfondie. Il ne s'agit pas d'un lavage hygiénique mais d'un comportement de manipulation tactile en milieu humide, vraisemblablement lié à la stimulation des récepteurs mécano-sensoriels des pattes antérieures. La présence d'eau amplifierait l'acuité tactile en ramollissant les coussinets. Ce comportement est induit même en l'absence de toute salissure sur l'aliment, et l'eau n'est pas indispensable à son déclenchement en captivité.
Le raton laveur fait preuve de capacités cognitives notables documentées en conditions expérimentales. Des études classiques, notamment celles menées par Walter Hunter dans les années 1910, puis reprises dans les décennies suivantes, ont démontré sa capacité à résoudre des problèmes mécaniques complexes, à manipuler des verrous et des loquet, et à mémoriser des solutions sur des périodes prolongées. Des travaux plus récents ont montré que les ratons laveurs urbains exhibent des performances supérieures aux individus ruraux dans certaines tâches de résolution de problèmes, suggérant une plasticité cognitive favorisée par l'exposition aux environnements anthropiques.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)PRÉDATION
Dans son aire de répartition native, le raton laveur commun est confronté à un ensemble de prédateurs naturels dont l'importance varie selon la région géographique, la composition locale des communautés de carnivores et la structure de l'habitat. Bien que l'espèce soit de taille moyenne et équipée de griffes acérées lui permettant une défense active, elle demeure vulnérable à plusieurs prédateurs de grande taille, en particulier les jeunes individus, les femelles gestantes ou allaitantes et les individus affaiblis.
En Amérique du Nord, le coyote (Canis latrans) représente le principal ennemi mammalien du raton laveur sur la majeure partie du continent. Des études télémétriques ont documenté une prédation significative par les coyotes, notamment dans les zones où les densités de ces canidés sont élevées. Le loup gris (Canis lupus), là où il subsiste en sympatrie, peut également prélever des ratons laveurs de manière opportuniste. Le puma (Puma concolor) est un autre prédateur naturel important dans les régions montagneuses et côtières de l'ouest américain, bien que les données de prédation directe restent rares dans la littérature.
Les grands rapaces constituent une source de prédation significative pour les juvéniles et les individus de petite taille. La grand-duc d'Amérique (Bubo virginianus) est considéré comme l'un des prédateurs aviaires les plus redoutables pour le raton laveur commun. Des prédations ont également été documentées par l'aigle royal (Aquila chrysaetos) et, plus rarement, par le faucon pèlerin (Falco peregrinus). La buse à queue rousse (Buteo jamaicensis) s'en prend principalement aux ratonneaux encore peu mobiles.
Le vison d'Amérique (Neogale vison) et la loutre de rivière (Lontra canadensis) peuvent exercer une pression prédatrice sur les ratonneaux dans les habitats aquatiques, bien que leur impact à l'échelle des populations reste difficile à quantifier. Le lynx roux (Lynx rufus) est également rapporté comme prédateur occasionnel dans les zones de chevauchement géographique, principalement dans les régions boisées du nord-est américain.
En Europe, où le raton laveur a été introduit en l'absence de ses prédateurs naturels historiques, la pression prédatrice est nettement plus faible. Le loup gris (Canis lupus), en cours de réexpansion dans certaines régions continentales, pourrait à terme exercer une régulation partielle des populations, mais les données restent pour l'heure insuffisantes. Le lynx boréal (Lynx lynx) et le renard roux (Vulpes vulpes) ont été identifiés comme prédateurs ponctuels.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)MENACES
Malgré la grande prospérité globale de ses populations, le raton laveur est confronté à diverses menaces anthropiques et environnementales qui influent localement sur sa dynamique démographique. À l'échelle historique, la chasse pour la récolte de sa fourrure et le piégeage commercial ont constitué la principale cause de mortalité d'origine humaine sur le continent nord-américain. Même si la demande de pelleterie a nettement régressé au cours des dernières décennies, la régulation par le tir ou le piégeage reste pratiquée dans de nombreuses régions pour limiter les dégâts agricoles ou prévenir les invasions biologiques dans les pays où l'espèce a été introduite.
La fragmentation de son habitat naturel par le développement des réseaux routiers et l'étalement urbain représente une autre menace majeure. Le trafic routier génère un taux de mortalité très élevé par collision routière, particulièrement lors de la saison des amours quand les mâles parcourent de grandes distances ou au printemps lors de la dispersion des jeunes. De surcroît, la destruction des forêts de feuillus anciennes réduit le nombre de cavités d'arbres disponibles pour la nidification, forçant l'animal à se rapprocher des constructions humaines et augmentant ainsi les risques de conflits d'intérêts direct avec les populations humaines.
Sur le plan sanitaire, le raton laveur est extrêmement sensible à diverses maladies infectieuses et parasitaires qui peuvent provoquer des épidémies dévastatrices au sein des populations locales. Il constitue l'un des principaux réservoirs de la rage en Amérique du Nord, une maladie virale mortelle qui entraîne régulièrement des campagnes d'abattage ou de vaccination. La maladie de Carré, causée par un morbillivirus, provoque également des vagues de mortalité très importantes. Enfin, l'exposition aux rodenticides anticoagulants et autres produits chimiques disséminés dans l'environnement urbain et agricole constitue une cause de mortalité indirecte non négligeable par empoisonnement secondaire.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)CONSERVATION
À l'échelle internationale, le raton laveur bénéficie d'un statut de conservation globalement très favorable. Il est classé dans la catégorie "Préoccupation mineure" (LC) sur la Liste rouge des espèces menacées de l'IUCN. Cette classification s'explique par sa vaste aire de répartition géographique, l'abondance de ses effectifs globaux et sa remarquable capacité à tolérer des modifications profondes de son environnement par les activités humaines. L'espèce ne fait pas l'objet d'un plan de protection globale sur le continent nord-américain, où la gestion des populations est confiée aux agences environnementales locales et régionales via des quotas de chasse ou de piégeage saisonniers.
En revanche, la situation juridique et environnementale du raton laveur se montre radicalement différente dans les pays où il a été introduit. En Europe, l'espèce est inscrite depuis le mois d'août 2016 sur la liste des espèces exotiques envahissantes préoccupantes pour l'Union européenne. Cette réglementation stricte interdit la détention, le transport, l'élevage, la vente et la libération de l'animal dans le milieu naturel. Les États membres sont tenus de mettre en place des mesures de surveillance, de contrôle ou d'éradication ciblées afin d'éviter la prolifération de l'espèce et de protéger l'avifaune locale ainsi que les amphibiens indigènes menacés par sa prédation.
Certaines populations insulaires très spécifiques ont fait l'objet d'une réévaluation récente des enjeux de conservation. Pendant longtemps, les ratons laveurs vivant sur plusieurs îles des Caraïbes ont été considérés comme des espèces ou sous-espèces endémiques menacées d'extinction nécessitant des mesures de sauvegarde urgentes. Toutefois, les analyses génétiques et morphologiques contemporaines ont démontré que ces populations insulaires résultaient d'introductions humaines relativement récentes depuis le continent. En conséquence, l'intérêt d'orienter des efforts de conservation vers ces formes insulaires a été abandonné, permettant de concentrer les politiques de protection de la biodiversité sur la faune véritablement autochtone de ces écosystèmes fragiles.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)TAXONOMIE
Le raton laveur possède une histoire nomenclaturale particulièrement intéressante, notamment parce que sa morphologie très variable a conduit les zoologistes à décrire de nombreuses formes géographiques. L’espèce est actuellement appelée Procyon lotor. Carl von Linné l’avait initialement placé sous le nom Ursus lotor dans la dixième édition de Systema Naturae. Le terme spécifique lotor fait référence au comportement associé à la manipulation des aliments et signifie approximativement "laveur". Le nom générique Procyon avait été établi auparavant par Gottlieb Conrad Christian Storr en 1780. Le raton laveur appartient aujourd’hui à la famille des Procyonidae, au sein des Carnivora, et constitue l’une des espèces les plus largement étudiées de cette famille.
Pendant le XIXe siècle et le début du XXe siècle, les naturalistes ont décrit de nombreux noms correspondant à des variations régionales. Les différences de couleur du pelage, de taille corporelle, de dimensions crâniennes, de proportions dentaires et d’isolement géographique ont été utilisées pour distinguer des populations. Cette période de "splitting" taxonomique a abouti à un nombre élevé de sous-espèces. Les îles de Floride, les Keys, les régions côtières et certaines îles des Caraïbes ont notamment fourni de nombreuses formes décrites séparément. Certaines étaient considérées comme suffisamment différentes pour être élevées au rang d’espèce, particulièrement dans les Antilles. Cette situation explique la présence historique de noms comme Procyon maynardi, Procyon minor, Procyon gloveralleni et Procyon insularis.
Les révisions du XXe siècle ont progressivement réduit cette fragmentation. Lotze et Anderson ont proposé en 1979 une synthèse détaillée de la biologie et de la taxonomie du raton laveur, tandis que Mammal Species of the World, dans sa troisième édition de 2005, a conservé sous-espèces :
- Raton laveur à face courte (Procyon lotor simus) †
- Raton laveur de Californie (Procyon lotor psora)
- Raton laveur de Floride (Procyon lotor elucus)
* Raton laveur de Guadeloupe (Procyon lotor minor)
- Raton laveur de Key Vaca (Procyon lotor auspicatus)
- Raton laveur de Key West (Procyon lotor incautus)
- Raton laveur de la Barbade (Procyon lotor gloveralleni) †
- Raton laveur de la Haute vallée du Mississippi (Procyon lotor hirtus)
- Raton laveur de l'Est (Procyon lotor lotor)
- Raton laveur de l'île de Saint Simon (Procyon lotor litoreus)
- Raton laveur de Louisiane (Procyon lotor megalodous)
- Raton laveur de Matecumbe Key (Procyon lotor inesperatus)
- Raton des Bahamas (Procyon lotor maynardi)
- Raton laveur de Snake River Plain (Procyon lotor excelsus)
- Raton laveur de Ten Thousand island (Procyon lotor marinus)
- Raton laveur de Tres Marias (Procyon lotor insularis)
- Raton laveur de Vancouver (Procyon lotor vancouverensis)
- Raton laveur du désert du Colorado (Procyon lotor pallidus)
- Raton laveur du Mexique (Procyon lotor hernandezii)
- Raton laveur du Pacifique nord-ouest (Procyon lotor pacificus)
- Raton laveur du Panama (Procyon lotor pumilus)
- Raton laveur du Texas (Procyon lotor fuscipes)
Auparavant deux autres sous-espèces (raton laveur de la baie de Chesapeake et raton laveur de l'Alabama) apparaissaient également sur cette liste. Aujourd'hui, elles ont simplement été fusionnées avec Procyon lotor marinus et Procyon lotor lotor.
La liste des sous-espèces du raton laveur reflète la diversité géographique de Procyon lotor et l’histoire des classifications successives de l’espèce. Certaines de ces formes restent reconnues dans les bases taxonomiques, tandis que d’autres ont vu leur statut réévalué à la lumière des études génétiques. Cette diversité infraspécifique témoigne ainsi de la grande variabilité géographique du raton laveur, sans que toutes les sous-espèces historiques correspondent nécessairement à des lignées évolutives distinctes.
© Manimalworld
CC-BY-NC-SA (Certains droits réservés)CLASSIFICATION
| Nom commun | Raton laveur |
| Autres noms | Raton laveur commun Raton laveur boréal |
| English name | Raccoon Common raccoon Northern raccoon |
| Español nombre | Mapache boreal y racuna |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Caniformia |
| Famille | Procyonidae |
| Genre | Procyon |
| Nom binominal | Procyon lotor |
| Décrit par | Carl von Linné (Linnaeus) |
| Date | 1758 |
Satut IUCN |  |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Linnaeus, C. (1758). Systema Naturae per Regna Tria Naturae, 10e éd. Laurentii Salvii, Stockholm.
Lotze, J.-H. & Anderson, S. (1979). Procyon lotor. Mammalian Species, 119, 1–8.
Gehrt, S. D. (2003). Raccoons (Procyon lotor and allies). In G. A. Feldhamer et al. (Eds.), Wild Mammals of North America (pp. 611–634). Johns Hopkins University Press.
Pirie, T. J., Thomas, R. L. & Fellowes, M. D. E. (2016). Mammal distribution records in the Algarve, Portugal: updates and new records. Mammalia, 80(2), 175–179.
Hossain, A. N. M., Barlow, A. C. R. & Greenwald, K. R. (2015). First confirmed photographic records of large mammals in Bangladesh. Mammalia, 79, 107–111.
Beltrán-Beck, B., García, F. J., & Gortázar, C. (2012). Raccoons in Europe: Disease hazards due to the establishment of an invasive species. European Journal of Wildlife Research, 58(1), 5-15.
Global Invasive Species Database (GISD). (2026). Species profile: Procyon lotor. UICN / ISSG.
Timm, R., Cuarón, A. D., Reid, F., Helgen, K., & González-Maya, J. F. (2016). Procyon lotor. The IUCN Red List of Threatened Species 2016: e.T41686A45216638.
Ikeda, T., Uchida, K., Matoba, Y. et al. (2004). Seasonal changes and differences between sexes in food habits of the raccoon Procyon lotor in Hokkaido, Japan. Mammal Study, 29(1), 1–10.
Fischer, M. L., Sullivan, M. J. P., Greiser, G. et al. (2021). Estimating and explaining the spread of the North American raccoon Procyon lotor in Germany. Global Ecology and Conservation, 26, e01474.
Sanderson, G. C. (1987). Raccoon. In M. Novak et al. (Eds.), Wild Furbearer Management and Conservation in North America (pp. 487–499). Ontario Ministry of Natural Resources.
Fritzell, E. K. (1978). Reproduction of raccoons (Procyon lotor) in North Dakota. American Midland Naturalist, 100(1), 253–256.
Fritzell, E. K. (1978). Ecology of raccoons (Procyon lotor) in a lightly hunted area of central Missouri. PhD dissertation, University of Missouri.
Prange, S., Gehrt, S. D. & Wiggers, E. P. (2003). Demographic factors contributing to high raccoon densities in urban landscapes. Journal of Wildlife Management, 67(2), 324–333.
Michler, F. U. (2017). Der Waschbär: Verhalten, Ökologie und Gefährdung. CALVENDO Verlag.
Lyall-Watson, M. (1963). A critical re-examination of food 'washing' behaviour in the raccoon (Procyon lotor Linn.). Proceedings of the Zoological Society of London, 141(2), 371–393.
Stanton, L. A., Sullivan, M. S. & Fazio, J. M. (2015). A standardized ethogram for the felidae: a tool for behavioral researchers. Applied Animal Behaviour Science, 173, 3–16.
Johnson, W. C., Bellitzky, C., Getz, L. L. et al. (1989). Raccoon predation on waterfowl. In L. Burger (Ed.), Proceedings of the Great Plains Wildlife Damage Control Workshop 9. University of Nebraska, Lincoln.
Trapp, G. R. & Hallberg, D. L. (1975). Ecology of the gray fox (Urocyon cinereoargenteus): a review. In M. W. Fox (Ed.), The Wild Canids (pp. 164–178). Van Nostrand Reinhold.
Goldman, E. A. (1950). Raccoons of North and Middle America. North American Fauna, 60, 1–153.
Helgen, K. M. & Wilson, D. E. (2005). A systematic and zoogeographic overview of the raccoons of Mexico and Central America. In V. Sánchez-Cordero & R. A. Medellín (Eds.), Contribuciones mastozoológicas en homenaje a Bernardo Villa (pp. 221–236). Instituto de Biología, UNAM.
Helgen, K. M. & Wilson, D. E. (2003). Taxonomic status and conservation relevance of the raccoons (Procyon spp.) of the West Indies. Journal of Zoology, 259(1), 69–76.
Koepfli, K.-P. et al. (2007). Phylogeny of the Procyonidae (Mammalia: Carnivora). Molecular Phylogenetics and Evolution, 43(3), 1076–1095.