
Ours noir d'Asie (Ursus thibetanus)
L’ours noir d’Asie (Ursus thibetanus) est un mammifère carnivore emblématique de la famille des ursidés. Reconnaissable à la marque claire en forme de croissant qui orne sa poitrine, ce plantigrade de taille moyenne joue un rôle écologique capital au sein des écosystèmes forestiers asiatiques, notamment par la dispersion des graines et la régulation des populations animales. Présent des massifs de l'Himalaya jusqu'aux forêts de l'Extrême-Orient russe et de l'archipel japonais, il fait preuve d'une adaptabilité remarquable face aux variations d'altitude et de climat. Cependant, l'espèce subit une forte pression anthropique liée à la fragmentation de son milieu de vie et à un braconnage intensif alimenté par le commerce illégal de ses organes. Classé "Vulnérable" par l'IUCN, sa préservation constitue aujourd'hui un enjeu environnemental majeur pour la biodiversité continentale. L’ours noir d’Asie est également appelé Ours à collier ou Ours à croissant.
© pushengtong - iNaturalist
 CC-BY-NC (Certains droits réservés)
 DESCRIPTION
L'ours noir d'Asie est un ours de taille moyenne, nettement plus gracile que l'ours brun (Ursus arctos) mais plus massif que l'ours malais (Helarctos malayanus). La longueur tête-corps varie généralement de 120 à 190 cm, la hauteur au garrot de 70 à 100 cm, et la queue, très courte, ne dépasse guère une dizaine de centimètres. Le dimorphisme sexuel est marqué. Les mâles adultes pèsent le plus souvent entre 100 et 200 kg, parfois davantage en automne, une fois les réserves de graisse constituées, tandis que les femelles se situent plutôt entre 50 et 125 kg. Ces valeurs varient selon les régions et les saisons, les populations septentrionales de l'Extrême-Orient russe étant en moyenne plus lourdes que celles d'Asie du Sud-Est.
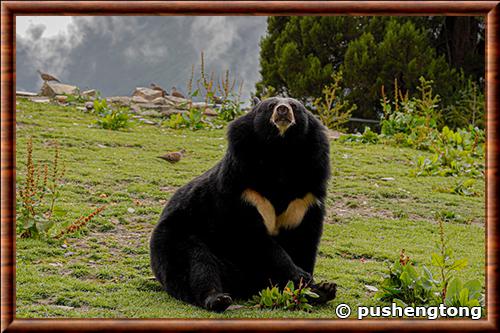
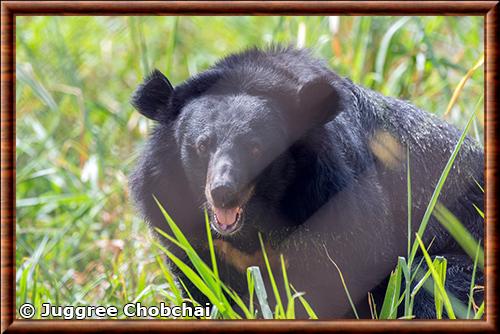
Le pelage est ordinairement d'un noir de jais, parfois teinté de brun roux, plus long et plus dense autour du cou et des épaules, où il forme une collerette qui accentue l'ampleur de la tête. Le trait le plus caractéristique est la marque pectorale claire, blanche à crème, en forme de V ou de croissant, dont l'étendue est variable et qui peut exceptionnellement faire défaut; elle valut à l'espèce ses noms vernaculaires. Le museau, relativement court et effilé, est de teinte plus claire, brunâtre ou beige, tout comme la lèvre inférieure, souvent bordée de blanc, et contraste avec la face sombre. Les oreilles, grandes, rondes et largement écartées, sont proportionnellement plus développées que chez la plupart des autres ursidés, alors que les yeux restent petits.
Les membres antérieurs sont puissants et les pattes, plantigrades, portent cinq doigts armés de griffes courbes, non rétractiles, longues d'environ quatre centimètres, qui facilitent l'ascension des troncs et l'ouverture des souches pourries. La formule dentaire est celle de la plupart des ursidés, soit 42 dents, avec des canines robustes et des molaires larges, à surface broyeuse, adaptées à un régime omnivore. Le crâne est plus léger que celui de l'ours brun, avec une crête sagittale bien marquée chez les vieux mâles.
L'animal se déplace d'une démarche lourde mais souple et peut se dresser sur ses pattes arrière pour inspecter son environnement ou cueillir des fruits. Sa vue est médiocre, mais son ouïe et surtout son odorat sont très développés. Les nouveau-nés, presque nus et aveugles, ne pèsent que quelques centaines de grammes et se couvrent rapidement d'un pelage sombre. La longévité atteint couramment une vingtaine d'années à l'état sauvage et dépasse trente ans en captivité. Des variations géographiques existent : les formes insulaires, comme l'ours de Taïwan, sont généralement décrites comme plus petites, avec une marque pectorale souvent très développée, tandis que les ours noir de l'Oussouri comptent parmi les plus grands.

© Shiv's fotografia - Wikimedia Commons
 CC-BY-SA (Certains droits réservés)
HABITAT
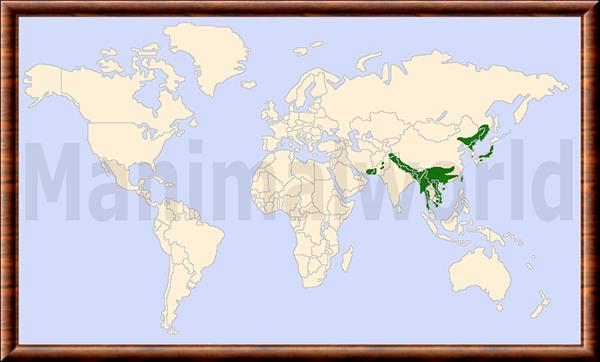
L'ours noir d'Asie possède l'une des aires de répartition les plus vastes parmi les ursidés asiatiques, mais celle-ci est aujourd'hui très fragmentée. Dans sa partie occidentale, elle s'étend du sud-est de l'Iran, du Baloutchistan pakistanais et de l'Afghanistan oriental aux contreforts de l'Himalaya, qu'elle suit à travers le nord du Pakistan, l'Inde, le Népal et le Bhoutan. Vers l'est, l'espèce se rencontre au Bangladesh, au Myanmar, puis dans la péninsule indochinoise (Thaïlande, Laos, Cambodge, Vietnam), avant de remonter dans le sud et le centre de la Chine, notamment au Sichuan, au Yunnan et au Shaanxi, puis dans le nord-est du pays.
Plus au nord, elle se maintient dans l'Extrême-Orient russe, dans les bassins de l'Oussouri et du Sikhote-Alin, où elle côtoie l'ours brun et le tigre de Sibérie. Elle persiste aussi en péninsule coréenne, où la population sud-coréenne, presque éteinte, est reconstituée par un programme de réintroduction mené dans le parc national du Jirisan, alors que la situation nord-coréenne reste mal connue. Au Japon, l'espèce occupe Honshū et Shikoku, où les effectifs sont infimes, tandis que la population de Kyūshū a été déclarée éteinte. Elle vit également à Taïwan, dans les chaînes montagneuses centrales. Elle a disparu de plusieurs zones périphériques de son aire historique, et des restes fossiles attribués à des formes proches ont été exhumés en Europe, témoignant d'une extension passée bien plus vaste.
L'espèce est avant tout forestière, associée aux forêts feuillues et mixtes tempérées, aux forêts subtropicales et, localement, aux forêts de conifères d'altitude. En montagne, elle occupe une large amplitude altitudinale, du niveau de la mer jusqu'à plus de 4 000 m dans l'Himalaya, avec des déplacements saisonniers marqués : elle exploite les pentes élevées au printemps et en été, puis redescend à l'automne vers les forêts de basse et moyenne altitude riches en glands, châtaignes et noix, avant de rejoindre ses gîtes d'hivernage. Dans les montagnes japonaises, des suivis télémétriques ont ainsi montré un lien étroit entre l'altitude fréquentée et la disponibilité alimentaire saisonnière.
Les domaines vitaux varient fortement selon le sexe, la productivité du milieu et la saison, allant de quelques dizaines à plus d'une centaine de kilomètres carrés pour les mâles, et se révélant nettement plus restreints pour les femelles. À Taïwan, le suivi par colliers GPS a montré que les surfaces nécessaires pouvaient excéder la taille de certaines réserves. L'ours noir d'Asie a besoin de grands arbres à cavités et de peuplements producteurs de fruits à coque, et il tolère mal les forêts morcelées, même s'il fréquente les lisières, les cultures et les plantations, ce qui l'expose aux conflits avec l'homme. Cette dépendance explique que les populations les plus viables se situent dans les grands ensembles forestiers peu fragmentés.
© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
ALIMENTATION
L'ours noir d'Asie est un omnivore dont le régime, essentiellement végétal, varie fortement selon les saisons et les régions. Les analyses de fèces et de contenus stomacaux réalisées en Chine, au Japon, à Taïwan et en Russie convergent : la matière végétale constitue l'essentiel de l'apport, complétée par des invertébrés et, de façon plus occasionnelle, par des vertébrés. Cette plasticité alimentaire lui permet d'occuper des milieux aussi différents que les forêts de hêtres et de chênes de l'archipel nippon et les forêts humides subtropicales d'Indochine, mais elle le rend aussi très dépendant des cycles de fructification des arbres.
Au printemps, à la sortie de l'hivernage, les ours consomment surtout des jeunes pousses, des feuilles tendres, des herbacées et des bourgeons, ainsi que des pousses de bambou là où elles abondent. Ils mettent aussi à profit les fourmis et leurs larves, trouvées dans les souches et les troncs décomposés. En été, les fruits charnus, baies, cerises sauvages et drupes diverses, prennent le relais, et l'on observe une consommation accrue d'insectes. L'automne est la période décisive&nbso;: l'animal entre en hyperphagie et se nourrit presque exclusivement de fruits à coque, glands de chênes, châtaignes, faines et noix, pour accumuler les réserves de graisse qui lui permettront de passer l'hiver et, pour les femelles gestantes, de mener à terme la gestation et la lactation.
La part animale du régime comprend des insectes sociaux, fourmis, termites, guêpes et abeilles, dont les nids sont éventrés pour en extraire couvain et miel, ainsi que des coléoptères et divers invertébrés. Les ours consomment volontiers des charognes, notamment de cervidés morts ou de bétail, et ils peuvent s'attaquer à de jeunes ongulés sauvages ou domestiques, voire à des proies plus grosses, bien que cette prédation reste une composante secondaire du régime chez la plupart des populations. Les élevages peuvent être attaqués dans certaines régions, ce qui alimente les conflits avec les éleveurs.
Le comportement alimentaire de l'espèce s'accompagne d'une forte activité arboricole. Pour atteindre les fruits à coque, l'ours noir d'Asie grimpe dans la couronne des arbres et casse les branches qu'il ramène sous lui, formant dans le houppier des plates-formes d'aspect semblable à des nids, bien visibles après la saison de fructification. Au printemps, il écorce certains arbres pour lécher la sève et le cambium, ce qui provoque des dégâts dans les plantations de conifères, notamment au Japon. L'espèce visite aussi les cultures de maïs, les vergers et les ruchers, particulièrement lors des années de faible fructification forestière, lorsque la raréfaction de la nourriture sauvage pousse les animaux vers les zones habitées.
© Juggree Chobchai - iNaturalist
CC-BY-NC (Certains droits réservés)REPRODUCTION
L'ours noir d'Asie est un animal polygyne et solitaire, qui ne forme pas de couple durable. Les accouplements ont lieu à la fin du printemps et en été, de juin à septembre selon les régions, période durant laquelle les mâles recherchent activement les femelles réceptives, parfois sur de longues distances, et peuvent se disputer leur accès. Les femelles peuvent s'accoupler avec plusieurs partenaires, et les interactions entre mâles et femelles se limitent à la durée de l'oestrus. Une femelle accompagnée de petits n'est généralement pas réceptive, ce qui espace les naissances.
Comme chez la plupart des ursidés des régions tempérées, la reproduction repose sur une implantation différée de l'embryon. L'oeuf fécondé, parvenu au stade de blastocyste, reste libre dans l'utérus pendant plusieurs mois et ne s'implante qu'à la fin de l'automne, si la femelle a accumulé des réserves suffisantes; dans le cas contraire, la gestation peut être interrompue. La gestation proprement dite ne dure qu'environ deux mois, de sorte que la durée apparente, de l'accouplement à la mise bas, atteint six à huit mois. Les naissances ont lieu en hiver, le plus souvent entre décembre et mars, dans le gîte d'hivernage. Chez les populations tropicales, le cycle est moins strictement saisonnier et plus étalé dans le temps.
La portée compte le plus souvent un ou deux petits, rarement trois. Les nouveau-nés sont minuscules, quelques centaines de grammes seulement, presque dépourvus de poils et aveugles; leurs yeux ne s'ouvrent qu'au bout de quelques semaines. Ils tètent leur mère dans le gîte, qu'ils quittent au printemps, vers avril ou mai, lorsque la végétation redémarre. Le sevrage intervient progressivement au cours de la première année, mais les jeunes restent avec leur mère jusqu'à l'âge de deux ou trois ans, apprenant auprès d'elle à repérer les arbres fructifères et à se déplacer dans leur domaine. L'intervalle entre deux portées est ainsi de deux ans au moins, et la maturité sexuelle n'est généralement atteinte qu'entre trois et quatre ans, voire plus tard dans les milieux pauvres.
Cette biologie de la reproduction, marquée par une faible fécondité, une maturité tardive et une forte dépendance aux ressources automnales, rend les populations très lentes à se reconstituer après une chasse ou un braconnage intensifs, en particulier lorsque des femelles reproductrices sont prélevées.
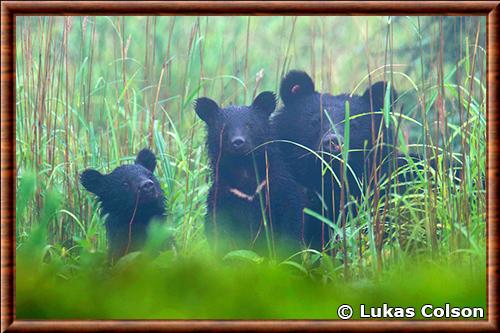
© Lukas Colson - iNaturalist
CC-BY-NC (Certains droits réservés)COMPORTEMENT
L'ours noir d'Asie est un animal essentiellement solitaire, hormis les femelles accompagnées de leurs jeunes et les rassemblements temporaires autour d'une source de nourriture abondante. Son rythme d'activité varie selon les régions et selon le degré de perturbation humaine : plutôt diurne et crépusculaire dans les zones préservées, comme l'ont montré les suivis réalisés à Taïwan, il tend à devenir nocturne là où il est chassé ou dérangé. En hiver, il passe plusieurs mois en torpeur dans son gîte, en particulier dans la partie nord de son aire, où il perd une part importante de son poids.
L'espèce est un excellent grimpeur, plus arboricole que la plupart des ursidés. Elle utilise les arbres pour se nourrir, se reposer, s'abriter et fuir, et passe parfois de longues heures dans la couronne des arbres fructifères. Elle nage également sans difficulté. Les ours marquent leur territoire en griffant et en mordant les troncs, et en y déposant des substances odorantes, sans défendre strictement des territoires exclusifs. Les domaines vitaux se chevauchent largement, la hiérarchie entre individus se réglant plutôt par des postures et des évitements que par des combats, ceux-ci étant surtout observés entre mâles en période de rut.
La communication repose sur un répertoire vocal et gestuel varié. Les individus émettent des grognements, des gémissements, des souffles, des claquements de mâchoires et, en cas de menace, des rugissements, souvent accompagnés d'une posture dressée et d'attaques simulées, qui servent à dissuader l'adversaire avant tout contact. Les mères communiquent avec leurs jeunes par des sons doux, tandis que les petits poussent des cris aigus lorsqu'ils sont en détresse. Face à l'homme, l'animal préfère généralement la fuite, mais il peut devenir dangereux lorsqu'il est surpris à courte distance, lorsqu'il défend ses petits ou une carcasse, ou lorsqu'il est blessé. Les accidents, qui touchent surtout la tête et le visage, sont rares au regard de l'étendue de l'aire, mais ils sont plus nombreux dans les régions densément peuplées et lors des années de pénurie de nourriture sauvage, comme l'ont montré les épisodes récents au Japon.
Dans les zones où il côtoie d'autres ursidés, l'ours noir d'Asie partage son habitat avec l'ours brun, en Russie, en Chine et dans l'Himalaya, et avec l'ours malais en Asie du Sud-Est. Il réduit la concurrence en se répartissant dans l'espace, en occupant des strates et des altitudes différentes, et en exploitant des ressources en partie distinctes. En Thaïlande, par exemple, l'étude de populations sympatriques a mis en évidence un partage des habitats forestiers entre les deux espèces. Variable, intelligent et doué d'une bonne mémoire spatiale, l'ours noir d'Asie sait mémoriser l'emplacement et la phénologie des ressources, ce qui lui permet de moduler ses déplacements saisonniers d'une année à l'autre.

Crédit photo: Alex Kantorovich - Zooinstitutes
PRÉDATION
Avec un poids pouvant dépasser 150 kg et des griffes puissantes, l'ours noir d'Asie adulte a peu de prédateurs naturels, et ceux-ci se limitent aux grands carnivores capables de s'attaquer à une proie de cette taille. Le principal d'entre eux est le tigre, qu'il s'agisse du tigre de Sibérie dans l'Extrême-Orient russe ou du tigre du Bengale en Asie du Sud et en Indochine. Dans le Sikhote-Alin, des études de terrain ont montré que le tigre s'attaque aux ours noirs d'Asie comme aux ours bruns, y compris lorsqu'ils sont en torpeur dans leur gîte hivernal, saison où la vulnérabilité de l'animal est maximale. Le léopard, plus petit, ne s'en prend vraisemblablement qu'aux individus jeunes ou affaiblis.
Les oursons et les jeunes immatures constituent la classe d'âge la plus exposée. Outre les grands félins, ils peuvent être pris par des loups, par des groupes de dholes dans les régions où ces canidés sont présents, par le lynx, voire, dans certaines zones montagneuses, par des carnivores de taille moyenne profitant d'un moment d'inattention de la mère. La vigilance maternelle est donc essentielle, et les jeunes apprennent très tôt à se réfugier dans les arbres au moindre signe d'alerte, stratégie de défense qui compense en partie la faiblesse de leur taille. Les femelles accompagnées de petits défendent ceux-ci avec une grande agressivité, et il est rare qu'un prédateur persiste face à une mère déterminée.
L'ours brun représente un cas particulier : il partage une grande partie de l'aire de l'ours noir d'Asie, en Russie, en Chine et dans l'Himalaya, et peut le tuer à l'occasion, même si les interactions documentées relèvent davantage de la concurrence pour les ressources que de la prédation proprement dite. En général, l'ours noir, moins massif, évite le contact avec son cousin et fréquente des milieux plus boisés et plus escarpés, tandis que l'ours brun occupe plus volontiers les milieux ouverts. Les charognes de tigre ou d'ours sont, par ailleurs, exploitées par d'autres charognards, ce qui intègre l'espèce dans un réseau trophique complexe où elle joue à la fois le rôle de proie et de concurrent.
Le véritable super-prédateur de l'espèce reste l'homme. Chassé depuis des siècles pour sa viande, sa fourrure, sa graisse, ses pattes et surtout sa vésicule biliaire, il a vu ses populations se réduire bien plus sous l'effet de la chasse et du braconnage que sous celui de la prédation naturelle. Aujourd'hui, la pression humaine, directe ou indirecte, pèse davantage sur la dynamique des populations que l'ensemble des prédateurs naturels réunis.
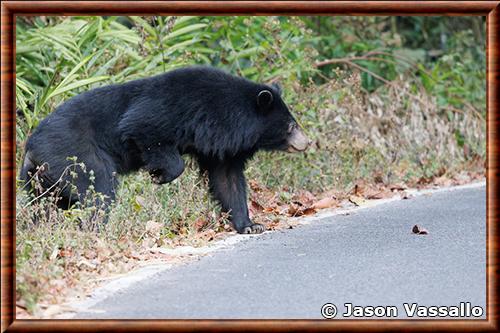
© Jason Vassallo - iNaturalist
CC-BY-NC (Certains droits réservés)MENACES
La première menace pesant sur l'ours noir d'Asie est la perte et la fragmentation de son habitat. Dans la majeure partie de son aire, notamment en Asie du Sud-Est, en Chine méridionale et sur le piémont himalayen, les forêts ont été converties en cultures, en plantations, en pâturages ou en zones urbanisées, et sont aujourd'hui morcelées par les routes, les barrages et les infrastructures. L'exploitation forestière, légale ou illégale, prélève en outre les vieux arbres à cavités dont l'espèce dépend pour hiverner et mettre bas, et réduit les peuplements producteurs de fruits à coque dont dépend son bilan énergétique annuel. Le morcellement isole les populations, abaisse leur diversité génétique et accroît leur vulnérabilité aux aléas démographiques.
La seconde menace, tout aussi grave, est le commerce de produits dérivés de l'ours, en particulier la bile, utilisée dans la médecine traditionnelle asiatique pour ses propriétés attribuées, ainsi que les pattes, consommées comme mets de luxe. Cette demande alimente un braconnage persistant et un système d'élevage de captivité, où des milliers d'ours sont maintenus en cage pour que leur bile soit prélevée de manière chronique, dans des conditions décrites comme très cruelles. Ces fermes, présentes en Chine, au Vietnam, au Laos et dans une moindre mesure ailleurs, s'approvisionnent en partie par la capture de jeunes ours dans la nature et n'ont pas permis de réduire la pression sur les populations sauvages, car la bile de provenance sauvage reste appréciée et considérée comme plus efficace par une partie des consommateurs.
Les conflits avec l'homme constituent un troisième ensemble de menaces. Les ours qui s'attaquent aux cultures, aux vergers, aux ruchers et au bétail sont persécutés, piégés ou empoisonnés par les agriculteurs. Dans toute l'Asie du Sud-Est, les pièges à collet posés pour d'autres espèces, tels que les sangliers et les ongulés, blessent et tuent sans discernement de nombreux ours, qui survivent parfois mutilés. Au Japon, les années de mauvaise fructification des hêtres et des chênes s'accompagnent de descentes massives vers les villages, d'attaques sur l'homme et d'abattages de régulation en nombre élevé, qui interrogent sur la durabilité de certaines populations régionales. Les collisions routières ajoutent une mortalité non négligeable dans les secteurs traversés par de grands axes.
Enfin, les populations les plus petites et les plus isolées, par exemple à Shikoku, au Baloutchistan ou dans certaines parties de la Corée et de l'Asie du Sud-Est, sont exposées aux effets de la consanguinité et aux événements aléatoires, comme l'a illustré la disparition de l'ours de Kyūshū. Le changement climatique est susceptible d'aggraver ces pressions en perturbant la phénologie de la fructification, l'altitude des ressources et la durée de l'hivernage. Les menaces agissent le plus souvent de façon cumulée : la fragmentation facilite le braconnage, qui appauvrit des populations déjà fragilisées, lesquelles se rapprochent des habitations en période de pénurie, alimentant à leur tour les conflits et les abattages.
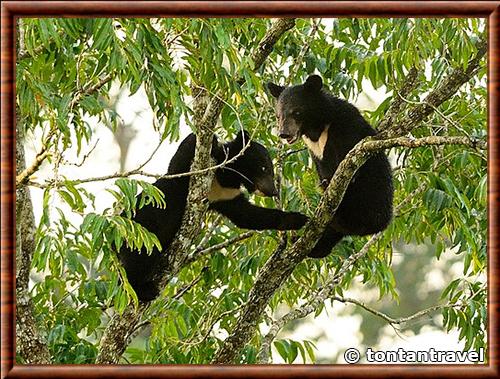
© tontantravel - Wikimedia Commons
CC-BY-SA (Certains droits réservés)CONSERVATION
L'ours noir d'Asie est classé "Vulnérable" (VU) sur la Liste rouge de l'IUCN, en raison d'un déclin que l'on estime important sur l'ensemble de l'aire, même si la taille réelle de la population mondiale demeure mal connue. Il figure à l'Annexe I de la CITES, ce qui interdit en principe le commerce international à des fins commerciales de l'espèce et de ses parties. Le niveau de protection légale varie fortement d'un pays à l'autre : l'espèce est inscrite au Livre rouge de Russie, bénéficie en Inde d'une protection de premier rang au titre de la loi sur la protection de la faune sauvage, est classée parmi les espèces protégées en Chine et à Taïwan, et est désignée comme espèce en danger en Corée du Sud. Au Japon, elle fait l'objet d'une gestion différenciée, avec des quotas d'abattage régionaux et une protection stricte dans certaines préfectures.
Les mesures de terrain reposent d'abord sur la protection des grands massifs forestiers, par des aires protégées et des corridors qui relient les populations. Elles comprennent aussi la lutte contre le braconnage, le retrait des pièges à collet par des patrouilles spécialisées, la réglementation de l'exploitation forestière et la protection des arbres à cavités. Des organisations spécialisées ont par ailleurs créé des centres de sauvetage qui accueillent des ours issus des élevages de bile ou de la détention illégale, et mènent des campagnes pour mettre fin à ce commerce. Le Vietnam a interdit l'extraction de bile sur les ours captifs, et la Corée du Sud a adopté une loi mettant fin à l'élevage d'ours pour la bile, dont l'entrée en vigueur était prévue en 2026.
Le programme de restauration de la population de Corée du Sud constitue l'une des initiatives les plus emblématiques. Lancé au début des années 2000 dans le parc national du Jirisan, il a consisté à relâcher des ours d'origine russe et nord-coréenne, puis à suivre leur reproduction, et a permis de reconstituer progressivement un noyau de population, bien qu'il reste fragile et dépendant d'une protection continue. À Taïwan et au Japon, des suivis par télémétrie et par génétique non invasive alimentent la gestion, et les approches fondées sur la prévention des conflits, comme les clôtures électriques, les poubelles résistantes, le zonage et la gestion des attractifs alimentaires, sont préférées aux seuls abattages.
De nombreuses lacunes subsistent. Les effectifs sont mal estimés dans la majeure partie de l'aire, en particulier dans les régions forestières difficiles d'accès du Myanmar, du Laos ou de l'Himalaya oriental, et les tendances locales restent incertaines. La coordination transfrontalière, la lutte contre la demande de bile et le financement de la recherche sur les sous-espèces les plus menacées, notamment celles du Baloutchistan et de Taïwan, figurent parmi les priorités identifiées par les spécialistes. À long terme, la survie de l'espèce dépendra autant de la conservation des forêts que de la capacité des sociétés locales à coexister avec un animal puissant, dont la présence est à la fois un atout écologique et une source de risques.
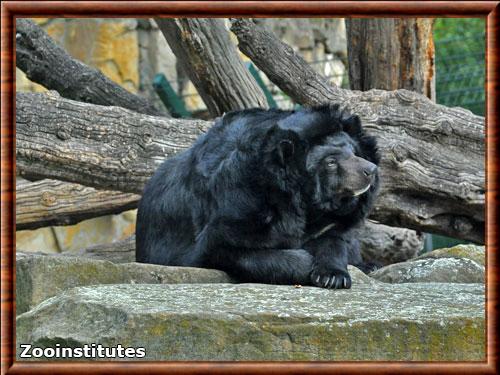
Crédit photo: Alex Kantorovich - Zooinstitutes
HYBRIDATION
L’hybridation chez l’ours noir d’Asie constitue un phénomène documenté aussi bien en milieu naturel qu’en captivité, traduisant la proximité génétique globale conservée au sein du genre Ursus. Dans la nature, des cas d’interfécondité sont observés de manière ponctuelle dans les zones d’impatrie où l’aire de répartition de l’espèce chevauche celle de l’ours brun (Ursus arctos), notamment en Extrême-Orient russe et dans certaines régions montagneuses de Chine. Ces croisements naturels, bien que rares, donnent naissance à des individus présentant des traits morphologiques intermédiaires, associant par exemple la corpulence plus massive et la bosse d'épaule discrète de l'ours brun à la marque pectorale claire caractéristique de l'ours noir d'Asie.
En captivité, la cohabitation forcée ou contrôlée au sein de parcs zoologiques et de ménageries a produit divers hybrides interspécifiques, notamment avec l’ours noir américain (Ursus americanus) et l’ours malais (Helarctos malayanus). Bien que la majorité de ces individus hybrides captive n’ait aucun impact sur la dynamique évolutive des populations sauvages ni de reconnaissance taxonomique pérenne, l’analyse de leur viabilité et de leur fertilité apporte aux chercheurs des enseignements précieux sur les barrières reproductives et le degré de divergence génétique récent au sein de la famille des ursidés.

© lappuggla - iNaturalist
CC-BY-NC (Certains droits réservés)TAXONOMIE
L'ours noir d'Asie fut décrit scientifiquement en 1823 par Georges Cuvier, à partir d'exemplaires rapportés d'Inde par le naturaliste Alfred Duvaucel, son beau-fils. Bien que l'épithète thibetanus évoque le Tibet, la localité typique est généralement placée dans la région de Sylhet, au Bengale. Pendant plus d'un siècle, l'animal fut tantôt rapproché de l'ours brun, tantôt considéré comme une forme proche de l'ours noir américain, et l'on hésita longtemps sur son rang générique. Le missionnaire et naturaliste Pierre Marie Heude, actif en Chine, proposa en 1901 de le placer dans un genre distinct, Selenarctos, que l'on a longtemps utilisé et qui est aujourd'hui considéré comme un synonyme de Ursus.
La classification moderne range l'espèce dans le genre Ursus, aux côtés de l'ours brun, de l'ours polaire et de l'ours noir américain, tandis que les autres ours vivants, l'ours malais, l'ours lippu, l'ours à lunettes et le panda géant, relèvent de genres ou de sous-familles distincts. Les analyses génétiques placent l'ours noir d'Asie comme le plus proche parent de l'ours noir américain, avec lequel il forme un groupe frère dont la séparation remonte à quelques millions d'années, au Pliocène. Les études des génomes mitochondriaux et nucléaires ont aussi révélé une radiation rapide des ursidés à la limite entre le Miocène et le Pliocène, ainsi que des échanges génétiques entre lignées, ce qui complique la reconstruction d'un arbre phylogénétique strictement ramifié.
L'histoire fossile de la lignée est mal documentée, mais des restes attribués à des formes proches de l'ours noir d'Asie ont été signalés en Europe et en Asie dès le Plio-Pléistocène, montrant que le groupe fut jadis bien plus répandu, au point d'avoir vécu sur le continent européen avant de s'y éteindre. Cette ancienneté et cette vaste distribution passée expliquent en partie la différenciation géographique observée aujourd'hui, résultant de l'isolement des populations au gré des fluctuations climatiques du Pléistocène.
Selon les classifications taxonomiques de référence, sept sous-espèces d'ours noir d'Asie sont officiellement reconnues à travers son aire de répartition géographique :
- Ursus thibetanus thibetanus (ours noir du Tibet) : La sous-espèce type, localisée principalement dans les régions montagneuses d'Assam, du Népal, du Myanmar, du sud de la Chine et de la Thaïlande.
- Ursus thibetanus formosanus (Ours noir de Taïwan) : Endémique de l'île de Taïwan, caractérisé par une taille légèrement plus petite et une tache pectorale très marquée.
- Ursus thibetanus gedrosianus (Ours noir du Baloutchistan) : Présent au sud du Pakistan et dans l'est de l'Iran, adapté aux milieux plus arides et particulièrement menacé d'extinction.
- Ursus thibetanus japonicus (Ours noir du Japon) : Présent sur les îles d'Honshu et de Shikoku, arborant une taille plus réduite et un museau sombre.
- Ursus thibetanus laniger (Ours noir de l'Himalaya) : Évoluant dans les hautes altitudes du Jammu-et-Cachemire et du Népal, pourvu d'un pelage plus long et d'une marque pectorale plus étroite.
- Ursus thibetanus mupinensis (Ours noir d’Indochine) : Sous-espèce présente dans le centre et le sud-ouest de la Chine, affichant une coloration globale très sombre.
- Ursus thibetanus ussuricus (Ours noir de l'Oussouri) : Réparti entre le sud-est de la Russie, le nord-est de la Chine et la Corée, représentant la sous-espèce la plus imposante physiquement.
Les travaux génétiques récents invitent à nuancer ce découpage fondé surtout sur la morphologie et la géographie. Les analyses d'ADN mitochondrial révèlent une structure marquée, avec des lignées distinctes pour les populations insulaires du Japon et de Taïwan, et plusieurs lignées continentales dont l'organisation ne correspond pas toujours aux sous-espèces nominales. Ces résultats remettent en question la validité de certaines unités, tout en confirmant l'originalité évolutive des populations insulaires, qui constituent des unités de conservation prioritaires. Une révision taxonomique intégrant des données génomiques à grande échelle reste souhaitable pour clarifier le statut des différentes formes.
CLASSIFICATION
| Nom commun | Ours noir d'Asie |
| Autre nom | Ours à collier |
| English name | Asian black bear Moon bear |
| Español nombre | Oso negro asiático |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Caniformia |
| Famille | Ursidae |
| Sous-famille | Ursinae |
| Genre | Ursus |
| Nom binominal | Ursus thibetanus |
| Décrit par | Georges Cuvier |
| Date | 1823 |
Satut IUCN |  |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Cuvier, G. (1823). Recherches sur les ossemens fossiles. Tome 4. Dufour et d'Ocagne, Paris.
Garshelis, D.L. & Steinmetz, R. (2020). Ursus thibetanus (amended version of 2016 assessment). The IUCN Red List of Threatened Species 2020.
Nowak, R.M. (1999). Walker's Mammals of the World, 6th edition. Johns Hopkins University Press, Baltimore.
Reid, D., Jiang, M., Teng, Q., Qin, Z. & Hu, J. (1991). Ecology of the Asiatic black bear (Ursus thibetanus) in Sichuan, China. Mammalia, 55(2): 221–237.
Hwang, M.-H., Garshelis, D.L., Wu, Y.-H. & Wang, Y. (2010). Home ranges of Asiatic black bears in the Central Mountains of Taiwan: gauging whether a reserve is big enough. Ursus, 21(1): 81–96.
Izumiyama, S. & Shiraishi, T. (2004). Seasonal changes in elevation and habitat use of the Asiatic black bear (Ursus thibetanus) in the Northern Japan Alps. Mammal Study, 29(1): 1–8.
Sathyakumar, S. (2001). Status and management of Asiatic black bear and Himalayan brown bear in India. Ursus, 12: 21–29.
Hashimoto, Y., Kaji, M., Sawada, H. & Takatsuki, S. (2003). Five-year study on the autumn food habits of the Asiatic black bear in relation to nut production. Ecological Research, 18(5): 485–492.
Hwang, M.-H., Garshelis, D.L. & Wang, Y. (2002). Diets of Asiatic black bears in Taiwan, with methodological and geographical comparisons. Ursus, 13: 111–125.
Spady, T.J., Lindburg, D.G. & Durrant, B.S. (2007). Evolution of reproductive seasonality in bears. Mammal Review, 37(1): 21–53.
Hwang, M.-H. & Garshelis, D.L. (2007). Activity patterns of Asiatic black bears (Ursus thibetanus) in the Central Mountains of Taiwan. Journal of Zoology, 271(2): 203–209.
Steinmetz, R., Garshelis, D.L., Chutipong, W. & Seuaturien, N. (2011). The shared preference niche of sympatric Asiatic black bears and sun bears in a tropical forest mosaic. PLoS ONE, 6(1): e14509.
Sunquist, M. & Sunquist, F. (2002). Wild Cats of the World. University of Chicago Press, Chicago.
Foley, K.E., Stengel, C.J. & Shepherd, C.R. (2011). Pills, Powders, Vials and Flakes: The Bear Bile Trade in Asia. TRAFFIC Southeast Asia, Petaling Jaya, Selangor, Malaysia.
Livingstone, E. & Shepherd, C.R. (2016). Bear farms in Lao PDR expand illegal wildlife trade. Global Ecology and Conservation, 8: 100–108.
Hwang, M.-H. (2003). Ecology of Asiatic black bears and people–bear interactions in Yushan National Park, Taiwan. PhD dissertation, University of Minnesota.
Galbreath, G. J., Groves, C. P., & Waits, L. P. (2006). Genetic resolution of the systematic status of the Asiatic black bear and sympatric ursids. Journal of Mammalogy, 87(5), 1011-1019.
Gray, A. P. (1972). Mammalian Hybrids: A Check-list with Bibliography. Commonwealth Agricultural Bureaux, Slough, UK.
Krause, J., Unger, T., Noçon, A., et al. (2008). Mitochondrial genomes reveal an explosive radiation of extinct and extant bears near the Miocene-Pliocene boundary. BMC Evolutionary Biology, 8: 220.
Kumar, V., Lammers, F., Bidon, T., et al. (2017). The evolutionary history of bears is characterized by gene flow across species. Scientific Reports, 7: 46487.
Pocock, R.I. (1932). The black and brown bears of Europe and Asia. Journal of the Bombay Natural History Society, 35: 771–823 ; 36: 101–138.
Wu, J., Kohno, N., Mano, S., Fukumoto, Y., Tanabe, H., Hasegawa, M. & Yonezawa, T. (2015). Phylogeographic and demographic analysis of the Asian black bear (Ursus thibetanus) based on mitochondrial DNA. PLoS ONE, 10(9): e0136398.
Yu, L., Li, Q.-W., Ryder, O.A. & Zhang, Y.-P. (2004). Phylogeny of the bears (Ursidae) based on nuclear and mitochondrial genes. Molecular Phylogenetics and Evolution, 32(2): 480–494.