
Rhinocéros de Sumatra (Dicerorhinus sumatrensis)
Le rhinocéros de Sumatra (Dicerorhinus sumatrensis) est le plus petit des rhinocéros vivants et le seul représentant actuel du genre Dicerorhinus. Il se distingue par ses deux cornes — une caractéristique rarissime chez les rhinocéros asiatiques — ainsi que par une pilosité prononcée qui lui confère un aspect archaïque évocateur de ses lointains ancêtres du Pléistocène. Classé en danger critique d'extinction (CR) sur la Liste rouge de l'IUCN, il ne subsiste plus qu'à l'état de populations résiduelles et fragmentées à Sumatra et, de manière incertaine, dans quelques forêts de Bornéo. Avec une estimation inférieure à quatre-vingts individus en liberté, il figure parmi les mammifères les plus menacés de la planète. Sa conservation mobilise aujourd'hui gouvernements, ONG et institutions zoologiques dans une course contre la montre, car la perte de cet animal signifierait l'extinction d'une lignée évolutive unique vieille de plusieurs millions d'années.

© Pfleiderer Johannes - Flickr
 All rights reserved (Tous droits réservés)
 DESCRIPTION
Le rhinocéros de Sumatra est le plus petit représentant actuel de la famille des Rhinocerotidae. Un adulte mesure entre 112 et 145 centimètres au garrot, pour une longueur corporelle oscillant entre 250 et 315 centimètres. Le poids varie considérablement selon les individus et les sexes : les femelles atteignent généralement entre 500 et 700 kilogrammes, tandis que les mâles peuvent dépasser les 800 kilogrammes, voire approcher exceptionnellement la tonne. Ces données en font un animal relativement gracile au regard de ses congénères africains ou du rhinocéros indien.
L'un des traits les plus saillants de l'espèce est la présence de deux cornes nasales, constituées de kératine compactée — et non d'os. La corne antérieure, la plus développée, peut atteindre 25 à 79 centimètres selon les individus et leur âge; la corne postérieure, souvent qualifiée de vestigiale, dépasse rarement quelques centimètres. Contrairement aux rhinocéros d'Afrique qui peuvent présenter des cornes beaucoup plus allongées, celles du rhinocéros de Sumatra restent généralement modestes en taille. Les cornes poussent tout au long de la vie de l'animal et peuvent se régénérer partiellement en cas de bris.
La peau du rhinocéros de Sumatra présente une caractéristique morphologique unique parmi les rhinocéros asiatiques : elle est couverte d'une pilosité dense de couleur brun-rougeâtre à brun foncé, surtout visible chez les jeunes individus. Chez les adultes, le pelage s'éclaircit et devient plus clairsemé, mais demeure suffisamment visible pour distinguer l'espèce à première vue. La peau elle-même est plissée autour du cou et des épaules, formant des replis caractéristiques, bien que moins prononcés que ceux du rhinocéros indien. Sa texture est rugueuse et épaisse, offrant une protection naturelle contre la végétation dense des forêts tropicales qu'il fréquente.
La tête est relativement grande et allongée, portée par un cou court et musculeux. Les oreilles, mobiles et frangées de poils blancs à leur extrémité, sont particulièrement développées, ce qui reflète une acuité auditive remarquable. Les yeux sont petits et latéraux, offrant un champ de vision panoramique mais une acuité visuelle faible — le rhinocéros est réputé myope. Les pattes sont courtes et robustes, terminées par trois doigts enveloppés de sabots cornés, typiques de l'ordre des périssodactyles. La queue est courte, légèrement aplatie et garnie de poils épars à son extrémité.

Crédit photo: Alex Kantorovich - Zooinstitutes
HABITAT
Historiquement, l'aire de répartition du rhinocéros de Sumatra était considérable : l'espèce occupait une vaste zone s'étendant de l'Inde du nord-est et du Bhoutan, en passant par la péninsule malaise, Sumatra et Bornéo, jusqu'aux confins du Yunnan en Chine méridionale. Des témoignages de l'époque coloniale et des relevés naturalistes du XIXᵉ siècle attestent sa présence dans des régions aussi diverses que la Thaïlande, le Myanmar, le Bangladesh et le Cambodge. Au fil des décennies, sous l'effet conjugué de la chasse intensive et de la déforestation, l'espèce a subi une contraction draconienne de son aire de distribution.
Aujourd'hui, les seules populations confirmées subsistent à Sumatra, principalement dans trois parcs nationaux : le parc national de Gunung Leuser (au nord de l'île, à cheval sur les provinces d'Aceh et de Sumatra Nord), le parc national de Kerinci Seblat (au centre) et le parc national de Bukit Barisan Selatan (au sud). Ces trois aires protégées constituent les derniers bastions de l'espèce sur le continent insulaire sumatranais. À Bornéo, la situation est encore plus alarmante : la sous-espèce Dicerorhinus sumatrensis harrissoni n'est plus représentée que par quelques individus dans la province du Sabah, en Malaisie, et son statut en Indonésie (province de Kalimantan) demeure très incertain.
En termes d'habitat, le rhinocéros de Sumatra est une espèce strictement forestière, fortement inféodée aux forêts tropicales humides de montagne et de basse altitude. Il affectionne particulièrement les forêts denses à sous-bois riche, les zones de végétation secondaire en régénération et les abords des cours d'eau. Les forêts de collines et de montagne, situées entre 500 et 2 000 mètres d'altitude, semblent constituer un habitat privilégié, peut-être en raison d'une pression de chasse historiquement moins intense et d'une disponibilité en minéraux liée aux sources naturelles.
L'espèce entretient un rapport étroit avec l'eau : elle fréquente régulièrement les baignoires de boue et les cours d'eau, qui jouent un rôle thermorégulateur et antiparasitaire essentiel. Ces points d'eau constituent également des lieux de marquage olfactif importants pour la communication intra-spécifique. La qualité et l'intégrité du couvert forestier sont déterminantes pour la viabilité des populations : l'espèce ne tolère pas les habitats trop ouverts ou trop perturbés et ne semble pas capable de s'adapter aux mosaïques agricoles qui remplacent progressivement les forêts primaires.

© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
ALIMENTATION
Le rhinocéros de Sumatra est un herbivore de type browser, c'est-à-dire qu'il consomme principalement des feuilles, des rameaux, des jeunes pousses et des fruits, par opposition aux grazers qui pâturent essentiellement des graminées. Son régime alimentaire est extrêmement varié et reflète la richesse floristique des forêts tropicales dans lesquelles il évolue. Des études de terrain basées sur l'observation directe, l'analyse de fèces et l'examen des traces de broutage estiment que l'espèce peut consommer plus d'une centaine d'espèces végétales différentes au cours d'une année.
Les végétaux préférentiellement consommés comprennent des figuiers sauvages (Ficus spp.), des bambousiées, diverses Marantacées, des Zingibéracées (comme le gingembre sauvage), des lianes, des Euphorbiacées et de nombreuses espèces d'arbustes et de jeunes arbres appartenant à des familles variées. L'animal est particulièrement attiré par les fruits tombés au sol, notamment ceux des figuiers et des palmiers sauvages, dont il profite selon leur disponibilité saisonnière. On lui connaît également un comportement opportuniste : il consomme volontiers les plantes pionnières qui colonisent les zones perturbées ou les clairières ouvertes par la chute de grands arbres.
Le sel minéral joue un rôle non négligeable dans le comportement alimentaire du rhinocéros de Sumatra. L'espèce est connue pour fréquenter des salines naturelles, sources riches en sodium, calcium et autres minéraux essentiels absents ou insuffisants dans la végétation ordinaire. Ces sites de léchage minéral constituent des points de rassemblement qui facilitent parfois les observations scientifiques et les relevés photographiques par caméra-piège. La fréquence de ces visites peut varier selon les saisons et les individus.
Un adulte consomme quotidiennement entre 50 et 60 kilogrammes de végétation fraîche pour couvrir ses besoins énergétiques, bien que cet estimation puisse varier selon la saison, la disponibilité des ressources et l'état physiologique de l'individu. La longue lèvre préhensile supérieure, caractéristique des rhinocéros asiatiques, joue un rôle instrumental dans la sélection et la manipulation des végétaux : elle permet de cueillir des feuilles et des rameaux avec une grande précision, même dans une végétation dense et entrelacée.

© Willem v Strien - Wikimedia Commons
 CC-BY (Certains droits réservés)
REPRODUCTION
Le rhinocéros de Sumatra est une espèce à reproduction lente, caractéristique commune aux grands mammifères à vie longue. La maturité sexuelle est atteinte relativement tardivement : entre six et sept ans chez les femelles, et autour de sept à neuf ans chez les mâles, bien que ces derniers ne parviennent souvent à se reproduire effectivement qu'après avoir accédé à un statut social leur permettant d'accéder aux femelles. Les femelles présentent un cycle oestral polyestreux d'une durée d'environ 21 à 25 jours, avec des phases de réceptivité sexuelle brèves et bien délimitées.
La gestation est l'une des plus longues parmi les mammifères terrestres non proboscidiens : elle dure en moyenne entre 15 et 16 mois, soit approximativement 475 jours. À l'issue de cette gestation, la femelle met bas un unique petit — les naissances gémellaires sont extrêmement rares et n'ont jamais été formellement documentées dans la nature. Le nouveau-né pèse entre 40 et 60 kilogrammes à la naissance et est recouvert d'un pelage brun rougeâtre dense, qui s'éclaircira progressivement au fil de sa croissance. Il est capable de se déplacer très peu après sa naissance, suivant immédiatement sa mère dans la forêt.
L'intervalle inter-naissance, c'est-à-dire le délai entre deux naissances successives pour une même femelle, est estimé à trois ou quatre ans dans les meilleures conditions. Ce rythme reproductif très faible rend l'espèce particulièrement vulnérable aux perturbations démographiques : une mortalité juvénile accrue ou une diminution du taux de fécondité peut rapidement conduire au déclin d'une population. Les observations en captivité ont révélé un problème spécifique : les femelles maintenues en isolement présentent fréquemment des kystes ovariens et des tumeurs utérines qui compromettent leur fertilité, un phénomène lié à l'absence de stimulation hormonale induite par des cycles ovulatoires répétés.
Le comportement reproducteur en milieu naturel est difficile à observer directement, mais les études comportementales menées sur des individus captifs et semi-captifs au Sabah Wildlife Department et au zoo de Cincinnati ont fourni des informations précieuses. La communication olfactive joue un rôle central dans le rituel de cour : les deux sexes déposent des marques d'urine et de fèces, et griffent le sol pour signaler leur présence et leur état reproducteur. Les interactions entre partenaires potentiels peuvent être prolongées et comprennent des vocalisations complexes, des contacts physiques et des comportements d'évitement réciproque avant l'accouplement proprement dit. La relation entre le mâle et la femelle est généralement brève et non permanente.

© International Rhino Foundation - Wikimedia Commons
CC-BY (Certains droits réservés)COMPORTEMENT
Le rhinocéros de Sumatra est fondamentalement solitaire, à l'exception des périodes de reproduction et du lien entre la mère et son petit, qui peut se prolonger pendant deux à trois ans. Les individus occupent des domaines vitaux dont la superficie varie selon le sexe, l'âge et la disponibilité des ressources : les mâles adultes défendent des territoires plus étendus, estimés entre 50 et 100 kilomètres carrés dans les meilleures études télémétriques disponibles, tandis que les femelles occupent des zones généralement plus réduites. Les domaines vitaux des mâles se chevauchent souvent avec ceux de plusieurs femelles, ce qui favorise les opportunités de reproduction.
La communication intra-spécifique repose principalement sur les signaux olfactifs et auditifs. Le rhinocéros de Sumatra délimite et signale sa présence à travers un répertoire de marques : dépôts de fèces en points stratégiques, aspersions d'urine, grattages du sol et torsions de jeunes arbustes. Ce comportement de marquage est particulièrement actif chez les mâles et semble corrélé à leur statut reproducteur. Les vocalisations comprennent des sifflements, des gémissements et des borborygmes graves, utilisés notamment lors des interactions entre individus ou dans des contextes de stress.
L'utilisation des baignoires de boue est un comportement central dans la vie quotidienne de l'espèce. Ces bains de boue, pratiqués régulièrement, ont plusieurs fonctions : thermorégulation dans les forêts tropicales aux températures et hygrométrie élevées, protection contre les insectes piqueurs et les ectoparasites cutanés, et entretien de la peau. Les mêmes points d'eau sont fréquemment revisités par un même individu, suggérant une fidélité aux sites familiers. Les mares de boue constituent également des lieux de communication indirecte entre individus qui se succèdent sans se croiser.
Le rythme d'activité du rhinocéros de Sumatra est principalement crépusculaire et nocturne, avec un pic d'activité en fin d'après-midi et tôt le matin. Durant les heures les plus chaudes de la journée, l'animal se repose à l'ombre ou dans la boue fraîche. Les individus peuvent parcourir plusieurs kilomètres par nuit à la recherche de nourriture, en empruntant des pistes forestières régulièrement utilisées et balisées par leurs marques olfactives. Bien que généralement discret et fuyant en présence humaine, le rhinocéros de Sumatra peut se montrer agressif lorsqu'il se sent piégé, à l'approche d'un prédateur ou lors d'interactions avec des congénères concurrents. Les combats entre mâles rivaux, bien que rares, peuvent laisser des blessures caractéristiques.

© International Rhino Foundation - Wikimedia Commons
CC-BY (Certains droits réservés)PRÉDATION
Le rhinocéros de Sumatra adulte ne possède pratiquement aucun prédateur naturel capable de lui infliger des dommages létaux. Sa taille, sa robustesse et l'épaisseur de sa peau en font un animal peu vulnérable aux attaques des grands carnivores présents dans son aire de répartition. Le tigre de Sumatra (Panthera tigris sumatrae), seul grand félin présent sur l'île, cohabite théoriquement avec le rhinocéros mais n'a jamais été documenté comme prédateur régulier de l'espèce à l'état adulte. En revanche, il est vraisemblable que les jeunes rhinocéros, surtout dans leurs premières semaines de vie, sont potentiellement vulnérables aux attaques de tigres, de panthères nébuleuses de la Sonde (Neofelis diardi) et éventuellement de grands reptiles.
Le python réticulé (Malayopython reticulatus), présent à Sumatra et à Bornéo, pourrait théoriquement représenter une menace pour les très jeunes individus. Des cas d'attaques de pythons réticulés sur de jeunes ongulés d'espèces voisines sont documentés, bien qu'aucun cas impliquant des jeunes rhinocéros de Sumatra n'ait été formellement enregistré dans la littérature scientifique. De même, le crocodile marin (Crocodylus porosus), présent dans les zones fluviales et côtières, pourrait occasionnellement s'en prendre à un très jeune individu s'aventurant près des berges, mais cela reste de l'ordre de la supposition.
Sur Bornéo, le nombre des prédateurs est encore plus limité qu'à Sumatra : la sous-espèce harrissoni n'y partage son habitat qu'avec la panthère nébuleuse de Bornéo (Neofelis diardi borneensis), le python réticulé et, dans certaines zones côtières, le crocodile marin. L'absence du tigre à Bornéo réduit encore la pression prédatrice sur l'espèce. Sur cette île, le rhinocéros de Sumatra était probablement, avant son déclin dramatique, l'un des grands herbivores les moins soumis à la prédation naturelle.
La quasi-absence de prédateurs naturels significatifs est caractéristique de nombreuses espèces de mégafaune insulaire, qui ont évolué dans des écosystèmes où les pressions prédatrices étaient faibles. Paradoxalement, cette vulnérabilité évolutive — un faible taux reproducteur, une vigilance naturelle moindre face aux menaces — amplifie l'impact dévastateur de la prédation humaine, qu'elle prenne la forme du braconnage direct ou de la perturbation de l'habitat. La pression de l'homme s'est substituée à celle des prédateurs naturels avec une intensité bien supérieure à ce que l'espèce est capable d'absorber sur le plan démographique. C'est pourquoi la menace principale pour la survie de l'espèce n'a jamais été l'écologie prédatrice, mais bien l'activité anthropique.

© Johannes Pfleiderer- BioLib
All rights reserved (Tous droits réservés)MENACES
La perte et la dégradation de l'habitat constituent la menace primordiale pour la survie à long terme du rhinocéros de Sumatra. Les forêts tropicales de Sumatra et de Bornéo sont soumises depuis plusieurs décennies à une pression de déforestation parmi les plus intenses au monde. L'expansion des plantations d'huile de palme (Elaeis guineensis) et d'acacia, l'exploitation forestière légale et illégale, ainsi que l'agriculture itinérante ont conduit à la destruction de millions d'hectares de forêts primaires. Entre 1985 et 2009, Sumatra aurait perdu près de la moitié de sa couverture forestière, condamnant les populations de rhinocéros à un isolement croissant dans des fragments d'habitat non viables à long terme.
Le braconnage pour la corne est la deuxième grande menace directe. La corne de rhinocéros est extrêmement prisée dans la médecine traditionnelle asiatique, notamment au Vietnam et en Chine, où elle est utilisée comme antipyrétique et remède à diverses maladies, malgré l'absence de toute validation scientifique de son efficacité. Le prix de la corne de rhinocéros sur le marché noir est devenu exorbitant — dépassant parfois celui de l'or ou de la cocaïne au kilogramme — ce qui rend le braconnage économiquement très attractif, même dans des zones officiellement protégées. Bien que l'interdiction internationale du commerce de corne de rhinocéros soit en vigueur depuis 1977 (CITES, Annexe I), les réseaux criminels transnationaux contournent ces restrictions.
La fragmentation des populations constitue une menace de second niveau mais aux conséquences potentiellement irréversibles. Lorsque des groupes d'individus se trouvent isolés les uns des autres par des zones agricoles ou des routes, les échanges génétiques entre populations deviennent impossibles. À court terme, cette fragmentation se traduit par une réduction de la diversité génétique et une augmentation de la consanguinité; à moyen terme, elle compromet la capacité adaptative de l'espèce face aux maladies et aux changements environnementaux. La mise en place de corridors écologiques reliant les parcs nationaux est reconnue comme une priorité, mais sa réalisation se heurte à des obstacles politiques et économiques considérables.
Les maladies infectieuses représentent une menace émergente dans le contexte des populations en captivité et semi-captivité. Les individus maintenus dans des centres de conservation ont parfois succombé à des infections par des herpèsvirus ou des trypanosomes, pathogènes pour lesquels l'espèce ne présente pas d'immunité naturelle robuste.
L'introduction de pathogènes depuis des animaux domestiques ou d'autres espèces sauvages pourrait également affecter les populations sauvages. Enfin, les perturbations liées aux activités humaines dans les zones tampons des parcs — tourisme non contrôlé, extraction artisanale de ressources, divagation du bétail — contribuent à repousser les rhinocéros vers des zones de moins bonne qualité.

© Izhamwong - Wikimedia Commons
CC-BY (Certains droits réservés)CONSERVATION
Le rhinocéros de Sumatra est actuellement considéré comme une espèce en grand danger d'extinction. Il est inscrit dans la catégorie "En danger critique" (CR) sur la Liste rouge de l'IUCN. L'espèce est également inscrite en Annexe I de la CITES depuis 1977 et est protégée juridiquement dans tous les États de son aire de répartition.
La conservation du rhinocéros de Sumatra fait appel à une combinaison de stratégies in situ et ex situ. Sur le plan de la protection directe, les gouvernements indonésien et malaisien ont mis en place des unités anti-braconnage qui patrouillent dans les parcs nationaux abritant l'espèce. En Indonésie, le programme Rhino Protection Units (RPU), lancé dans les années 1990 avec le soutien d'organisations comme le WWF et l'International Rhino Foundation, a permis de réduire sensiblement la pression de braconnage dans certaines zones. Ces unités effectuent des patrouilles régulières, démantèlent des pièges et collectent des données sur la présence des animaux.
Les programmes d'élevage en captivité ont connu des résultats mitigés mais indispensables. Le centre de conservation Sumatran Rhino Sanctuary (SRS), créé dans le parc national de Way Kambas en Indonésie, abrite plusieurs individus et a permis d'obtenir des naissances historiques. L'un des succès les plus marquants fut la naissance de Harapan en 2007 au zoo de Cincinnati, deuxième rhinocéros de Sumatra né en captivité aux États-Unis. Ces programmes fournissent des informations précieuses sur la biologie reproductive de l'espèce et maintiennent une assurance génétique en cas d'extinction sauvage. En 2019, la mort de la femelle Iman au Sabah — dernier individu de Malaisie péninsulaire — a rappelé l'urgence absolue de ces dispositifs.
Sur le plan technologique, les caméras-pièges, les systèmes de radio-télémétrie et, plus récemment, les analyses d'ADN environnemental (eDNA) à partir d'échantillons d'eau ou de sol, permettent de détecter et de surveiller des individus dans des forêts denses inaccessibles. Ces outils contribuent à mieux estimer la taille des populations, à identifier des individus inconnus et à prioriser les zones à protéger. La génomique de la conservation offre également de nouvelles perspectives : l'analyse de la diversité génétique des individus captifs et sauvages guide les décisions d'appariement et permet d'optimiser la variabilité du patrimoine génétique de l'espèce.
La coopération internationale est un pilier central de la conservation de l'espèce. L'Asian Rhino Specialist Group de l'IUCN coordonne les efforts à l'échelle régionale, et plusieurs accords bilatéraux lient l'Indonésie et la Malaisie autour de la gestion des populations transfrontalières. Le plan d'action pour la conservation du rhinocéros de Sumatra (Sumatran Rhino Survival Alliance, ou SRSA) définit des objectifs à court et moyen terme : augmenter le nombre d'individus dans les centres de conservation, favoriser la reproduction assistée et réintroduire des individus dans des zones sécurisées. Des technologies de pointe comme la fécondation in vitro et la cryopréservation des gamètes sont actuellement explorées comme options de dernier recours.
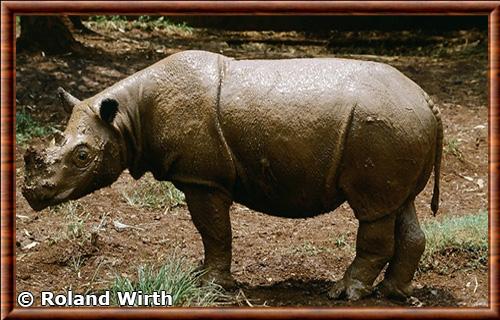
© Roland Wirth - BioLib
All rights reserved (Tous droits réservés)TAXONOMIE
L’histoire taxonomique du rhinocéros de Sumatra remonte à l'aube de la zoologie moderne. La première description scientifique de cet animal a été formulée en 1814 par le naturaliste et anatomiste saxon Gotthelf Fischer von Waldheim, sous le nom de Rhinoceros sumatrensis, à partir d'échantillons et de dépouilles collectés sur l'île de Sumatra en Indonésie. À cette époque, la classification des périssodactyles sous l'égide du système linnéen regroupait encore l'ensemble des rhinocéros vivants sous l'unique genre Rhinoceros.
C'est en 1868 que le naturaliste britannique John Edward Gray proposa la création du genre Dicerorhinus pour distinguer le rhinocéros de Sumatra des autres rhinocéros asiatiques. L'attribution au genre Dicerorhinus n'a pas toujours fait l'unanimité : certains auteurs ont proposé de réintégrer l'espèce dans le genre Rhinoceros, tandis que d'autres suggéraient des affinités plus proches avec les rhinocéros africains qu'avec les espèces asiatiques. Ces débats ont été en grande partie tranchés par les études phylogénétiques moléculaires récentes.
Les études moléculaires ont profondément renouvelé la compréhension de la phylogénie des rhinocéros. Les analyses de l'ADN mitochondrial et nucléaire publiées au tournant du XXIᵉ siècle ont confirmé que Dicerorhinus sumatrensis est le rhinocéros vivant le plus proche des rhinocéros laineux du Pléistocène (Coelodonta antiquitatis) et qu'il constitue en réalité la lignée soeur de l'ensemble formé par les rhinocéros africains (rhinocéros blanc et rhinocéros noir), et non le groupe frère du rhinocéros indien comme on le supposait autrefois. Cette relation phylogénétique inattendue a des implications majeures pour comprendre la biogéographie et l'évolution de la famille Rhinocerotidae.
Une étude génomique publiée en 2021 dans Nature Communications par Liu et al. a apporté un éclairage supplémentaire en montrant que des flux génétiques anciens avaient existé entre les ancêtres du rhinocéros de Sumatra et ceux des rhinocéros laineux, confirmant la proximité phylogénétique de ces deux groupes et révélant une histoire évolutive plus réticulée qu'on ne le pensait. Ces données moléculaires ont par ailleurs mis en lumière des différences génétiques substantielles entre les populations de Sumatra et de Bornéo, renforçant la pertinence de distinguer des unités évolutives distinctes pour guider les décisions de conservation.
La taxonomie infraspécifique du rhinocéros de Sumatra a longtemps été débattue, et le nombre de sous-espèces reconnues varie selon les autorités taxonomiques. La classification actuellement la plus largement acceptée distingue trois sous-espèces, bien que certains auteurs récents remettent en cause ce découpage à la lumière des données génétiques.
- Dicerorhinus sumatrensis sumatrensis : est la plus abondante et la mieux documentée des trois. Elle est endémique à l'île de Sumatra, en Indonésie, où elle subsiste dans trois parcs nationaux. Morphologiquement, elle présente les caractéristiques typiques de l'espèce (pelage brun rougeâtre, deux cornes bien développées, peau plissée au niveau du cou). Cette sous-espèce concentre la grande majorité des individus restants à l'état sauvage et des programmes d'élevage en captivité, notamment au sein du Sumatran Rhino Sanctuary de Way Kambas. On estimait sa population à moins de soixante-dix individus en 2020.
- Dicerorhinus sumatrensis harrissoni : également appelé rhinocéros de Bornéo ou rhinocéros pygmée de Bornéo. C'est la plus petite des trois sous-espèces et se distingue morphologiquement par une taille corporelle légèrement inférieure, une pilosité parfois plus dense chez les jeunes et des proportions corporelles différentes. Elle est endémique à l'île de Bornéo, où elle ne subsiste plus qu'au Sabah (Malaisie orientale), avec une population estimée à quelques dizaines d'individus au mieux, probablement moins d'une vingtaine. Son statut à Kalimantan (Indonésie) est incertain depuis plusieurs années, et des caméras-pièges ont occasionnellement capturé des images d'individus dans la région de Kutai. La mort de la femelle Iman en 2019, dernier individu confirmé en captivité en Malaisie, a constitué un coup dur pour la sous-espèce. Son nom rend hommage au zoologiste britannique Tom Harrisson.
- Dicerorhinus sumatrensis lasiotis : parfois appelée rhinocéros du Nord ou rhinocéros à grandes oreilles, est aujourd'hui considérée comme éteinte. Elle occupait autrefois les forêts du Bangladesh, d'Assam (Inde du nord-est), du Bhutan, du Myanmar et peut-être du Yunnan (Chine méridionale). Le nom lasiotis faisait référence aux longues franges de poils caractérisant les pavillons auriculaires des individus de cette sous-espèce. Les dernières observations fiables datent du milieu du XXe siècle, et les tentatives de localisation d'individus survivants dans le nord-est de l'Inde et au Myanmar dans les années 1980 et 1990 sont restées sans résultat concluant. La sous-espèce est officiellement considérée comme éteinte par l'IUCN.
CLASSIFICATION
| Nom commun | Rhinocéros de Sumatra |
| English name | Sumatran rhinoceros |
| Español nombre | Rinoceronte De Sumatra |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Perissodactyla |
| Famille | Rhinocerotidae |
| Sous-famille | Rhinocerotinae |
| Genre | Dicerorhinus |
| Nom binominal | Dicerorhinus sumatrensis |
| Décrit par | Gotthelf Fischer von Waldheim |
| Date | 1814 |
Satut IUCN |  |
FICHE POUR ENFANTS
Pour découvrir le monde animal tout en s'amusant, retrouvez ci-dessous une fiche simplifiée en image du rhinocéros de Sumatra pour vos enfants.

© Manimalworld
CC-BY-NC-SA (Certains droits réservés)SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
The International Rhino Foundation
* Bibliographie
Fischer, G. (1814). Zoognosia tabulis synopticis illustrata, in usum praelectionum Academiae imperialis medico-chirurgicae mosquensis edita. Typis Nicolai Sergeidis Vsevolozsky, Mosquae.
Gray, J.E. (1868). Synopsis of the species of rhinoceros and allied pachydermata. Proceedings of the Zoological Society of London, 1867: 1003–1032.
Groves, C.P. (1967). On the rhinoceroses of South-East Asia. Säugetierkundliche Mitteilungen, 15: 221–237.
Tougard, C., Delefosse, T., Hänni, C. & Montgelard, C. (2001). Phylogenetic relationships of the five extant rhinoceros species (Rhinocerotidae, Perissodactyla) based on mitochondrial cytochrome b and 12S rRNA genes. Molecular Phylogenetics and Evolution, 19(1): 34–44.
Liu, S., Westbury, M.V., Dussex, N. et al. (2021). Ancient and modern genomes unravel the evolutionary history of the rhinoceros family. Cell, 185: 2309–2323.
Groves, C.P. & Grubb, P. (2011). Ungulate Taxonomy. Johns Hopkins University Press, Baltimore.
Rookmaaker, L.C. (1998). The Rhinoceros in Captivity: A List of 2439 Rhinoceroses Kept from Roman Times to 1994. SPB Academic Publishing, The Hague.
Dinerstein, E. (2003). The Return of the Unicorns: The Natural History and Conservation of the Greater One-Horned Rhinoceros. Columbia University Press, New York.
Lynam, A.J. (2010). Securing a future for wild Indochinese tigers: Transforming tiger vacuums into tiger source sites. Integrative Zoology, 5: 324–334.
Stibig, H.J., Achard, F., Carboni, S., Rasi, R. & Miettinen, J. (2014). Change in tropical forest cover of Southeast Asia from 1990 to 2010. Biogeosciences, 11: 247–258.
Amato, G., Wharton, D., Zainuddin, Z.Z. & Powell, J.R. (1995). Assessment of conservation units for the Sumatran rhinoceros (Dicerorhinus sumatrensis). Zoo Biology, 14: 395–402.
Tabaranza, B.R., Jr. (1997). Notes on the food and feeding habits of the Sumatran rhinoceros in captivity. Pachyderm, 24: 67–70.
Borner, M. (1979). Sumatra rhinoceros in Taman Negara. Oryx, 15(2): 177–179.
Heistermann, M., Zarth, S., Bingger, J.B. & Hodges, J.K. (2006). Reproductive status in the female Sumatran rhinoceros: development and application of an endocrine approach for monitoring cycle and pregnancy. Animal Reproduction Science, 95: 174–188.
Schaffer, N.E., Foley, G.L., Gill, S. & Graham, S.D. (1994). Practical aspects of reproductive tract evaluation in the Sumatran rhinoceros. Zoo Biology, 13: 413–422.
Mohammad Azhari Zainuddin, Z. (1994). The reproductive biology of the Sumatran rhinoceros at the Sumatran Rhino Conservation Centre, Sungai Dusun, Malaysia. Pachyderm, 18: 59–66.
Strien, N.J. van. (1986). Dicerorhinus sumatrensis (Fischer), the Sumatran or two-horned Asiatic rhinoceros: a study of literature. Mededelingen Landbouwhogeschool Wageningen 74–16, Wageningen.
Yeap, C.A., Campos-Arceiz, A., Laurance, W.F. & Wilson, K.A. (2019). Creating corridors for wildlife: biodiversity and landscape connectivity in Peninsular Malaysia. Land, 8: 68.
Brook, B.W., Sodhi, N.S. & Ng, P.K.L. (2003). Catastrophic extinctions follow deforestation in Singapore. Nature, 424: 420–423.
Shepherd, C.R. & Magnus, N. (2004). Nowhere to Hide: The Trade in Sumatran Tiger. TRAFFIC Southeast Asia, Petaling Jaya.
Ellis, S. & Talukdar, B. (2013). Dicerorhinus sumatrensis. The IUCN Red List of Threatened Species 2013. IUCN, Gland.
International Rhino Foundation. (2020). Annual Report 2020: Saving Rhinos from Extinction. IRF, Yulee, Florida.
Willerslev, E., et al. (2009). Analysis of complete mitochondrial genomes from extinct woolly rhinoceros reveals complex phylogeographic structure. BMC Evolutionary Biology, 9, 95.
Foose, T. J., & van Strien, N. J. (1997). Asian Rhinos – Status Survey and Conservation Action Plan. IUCN/SSC Asian Rhino Specialist Group. IUCN, Gland, Switzerland.
Zafir, A. W. A., et al. (2011). Moving towards a viable population of Sumatran rhinoceros Dicerorhinus sumatrensis in Peninsular Malaysia. Oryx, 45(2), 216-222.