
Sanglier de Java (Sus verrucosus)
Le sanglier de Java (Sus verrucosus) est un est un mammifère artiodactyle endémique des grandes îles de l'archipel indonésien, principalement Java et Madura. Membre de la famille des Suidae, il se distingue par la présence de verrues faciales caractéristiques qui lui ont valu son épithète spécifique latine. Espèce classée "En danger" (EN) sur la Liste rouge de l'IUCN, elle fait face à une réduction drastique de ses populations, en raison de la destruction de son habitat naturel et de la pression cynégétique intense qui s'exerce sur l'ensemble de son aire de répartition. Longtemps confondu avec d'autres espèces du genre Sus, le sanglier de Java constitue aujourd'hui un sujet d'étude prioritaire pour les zoologistes et les gestionnaires de la conservation en Asie du Sud-Est, compte tenu de son déclin alarmant et de son rôle écologique structurant au sein des écosystèmes insulaires javanais. Le sanglier de Java est également appelé sanglier verruqueux de Java.

© Gerrald Kevin - iNaturalist
 CC-BY-NC (Certains droits réservés)
 DESCRIPTION
Le sanglier de Java est un ongulé de taille moyenne à grande, présentant une morphologie robuste caractéristique des suidés sauvages, mais accompagnée de traits anatomiques distinctifs qui permettent de le différencier aisément des espèces congénères. Les adultes mesurent entre 90 et 190 centimètres de longueur totale, pour une hauteur au garrot oscillant entre 70 et 85 centimètres. La masse corporelle varie considérablement selon le sexe et l'âge. Les femelles adultes pèsent généralement entre 44 et 65 kilogrammes, tandis que les mâles peuvent atteindre jusqu'à 108 kilogrammes dans les populations les mieux représentées. Cet important dimorphisme sexuel constitue l'une des signatures morphologiques du genre Sus.
Le pelage est dense, rêche et majoritairement brun sombre à brun jaunâtre, parfois mêlé de poils plus clairs sur le ventre et les flancs. Les juvéniles présentent un pelage rayé de bandes longitudinales claires, comme c'est le cas chez la plupart des jeunes suidés, avant que le patron de coloration adulte ne s'installe progressivement entre six et douze mois. La tête est longue, triangulaire et portée bas; le groin mobile et cartilagineux est adapté au fouissage du sol, ce qui en fait l'un des principaux outils alimentaires de l'espèce.
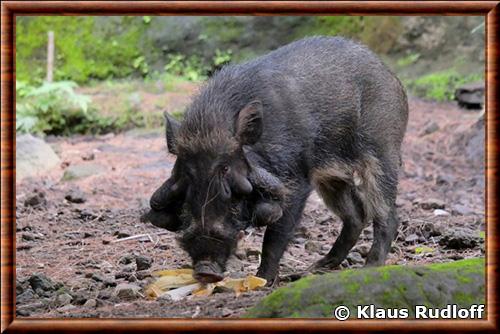
La caractéristique anatomique la plus saillante du sanglier de Java réside dans la présence de verrues cutanées volumineuses disposées en trois paires sur la face. Une première paire se situe juste en dessous des yeux, une deuxième en avant des canines chez les mâles, et une troisième à la hauteur de la mandibule inférieure. Ces excroissances, absentes ou réduites chez les femelles, sont particulièrement développées chez les vieux mâles dominants, où elles prennent un aspect kératinisé prononcé. Leur fonction précise reste débattue : certains auteurs les interprètent comme une protection lors des combats intraspécifiques, d'autres leur attribuent un rôle dans la signalisation sexuelle.
Les canines supérieures des mâles, appelées défenses, sont fortement courbées vers le haut et l'extérieur, pouvant dépasser dix centimètres de longueur chez les individus âgés. Ces armes redoutables servent à la fois lors des combats pour l'accès aux femelles et comme moyen de défense contre les prédateurs. Les femelles possèdent également des canines, mais celles-ci restent nettement moins développées. La denture complète comprend 44 dents, formule caractéristique de la famille des suidés. La queue est courte, touffue à son extrémité et tenue le plus souvent à la verticale lors de la locomotion. Les membres sont trapus, bien musclés, avec des sabots larges et légèrement divergents, bien adaptés aux sols meubles et humides des plaines alluviales.

© Klaus Rudloff - BioLib
 All rights reserved (Tous droits réservés)
HABITAT
L'aire de répartition originelle du sanglier de Java couvrait l'ensemble de l'île de Java, la quasi-totalité de l'île de Madura adjacente, ainsi que l'île de Bawean, plus isolée, située dans la mer de Java à environ 150 kilomètres au nord de Java. Des introductions historiques ont également été signalées dans certaines parties de Sulawesi et des îles Moluques, bien que leur statut actuel dans ces régions soit incertain. Au cours du XXe siècle, la répartition de l'espèce a connu un recul dramatique sous l'effet de l'urbanisation massive et de la déforestation de Java, île désormais parmi les plus densément peuplées du monde avec plus de 150 millions d'habitants.
Aujourd'hui, les populations sauvages de sanglier de Java se cantonnent principalement à quelques zones protégées résiduelles, notamment le parc national d'Ujung Kulon, à l'extrémité occidentale de Java, le parc national de Baluran, à l'est de l'île, et le parc national de Meru Betiri. Sur l'île de Bawean, une population distincte, parfois rattachée à la sous-espèces Sus verrucosus blouchi, subsiste dans un état d'isolement géographique complet depuis plusieurs millénaires, lui conférant une valeur évolutive et conservatoire particulière.
L'espèce manifeste une préférence marquée pour les formations de forêt tropicale humide de plaine, les zones de lisière entre forêt et milieux ouverts, ainsi que les prairies inondables et les berges des cours d'eau. Elle est particulièrement associée aux forêts à Dipterocarpacées des basses terres, dont elle exploite abondamment les ressources en fruits, graines et matière végétale. Contrairement au sanglier eurasien (Sus scrofa), elle évite généralement les altitudes supérieures à 1 500 mètres et ne colonise pas les milieux forestiers montagnards. Les zones marécageuses, les forêts galeries et les plantations abandonnées constituent également des habitats fréquentés, notamment lors des périodes de forte pression humaine sur les noyaux forestiers primaires.
La structure de l'habitat joue un rôle fondamental dans la biologie de l'espèce : Le sanglier de Java requiert la présence de points d'eau permanents pour se vautrer, activité thermorégulatrice et antiparasitaire essentielle, ainsi que des zones à litière végétale épaisse propice au fouissage. La fragmentation et la dégradation des écosystèmes forestiers javanais ont considérablement réduit la disponibilité de ces microhabitats indispensables, forçant les populations survivantes à se concentrer dans des îlots de forêt de plus en plus réduits et isolés.

© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
ALIMENTATION
Le sanglier de Java est un omnivore opportuniste dont le régime alimentaire est fortement structuré par la disponibilité saisonnière des ressources et par la nature des habitats qu'il fréquente. À l'instar des autres suidés, il présente une grande plasticité trophique qui lui permet d'exploiter une large gamme de ressources végétales et animales, constituant ainsi un acteur clé des dynamiques d'écosystèmes au sein des forêts tropicales insulaires.
La part végétale du régime représente la fraction la plus importante de l'alimentation, notamment les fruits charnus tombés au sol, les graines, les rhizomes, les bulbes et les racines que l'animal extrait du sol par fouissage grâce à son groin puissant et mobile. Les fruits des arbres forestiers, en particulier ceux des Dipterocarpacées et des figuiers, constituent des ressources de première importance lors des périodes de fructification. Les événements de mast fruiting — productions massives et synchronisées de graines observées dans certaines forêts tropicales d'Asie du Sud-Est — représentent des pics d'abondance alimentaire dont le sanglier de Java est capable de tirer parti de manière intensive, accumulant alors des réserves lipidiques importantes pour les périodes de disette. En dehors de ces épisodes d'abondance, l'espèce complète son régime avec diverses herbes, pousses tendres, champignons, lichens et débris végétaux en décomposition.
La matière animale, bien que représentant une fraction moindre du régime total, constitue un apport protéique non négligeable : invertébrés du sol (vers de terre, insectes, coléoptères, termites), petits vertébrés, oeufs d'oiseaux nichant au sol et charognes sont consommés de manière opportuniste selon leur disponibilité.

© Johannes Pfleiderer - BioLib / Zootierliste.de
All rights reserved (Tous droits réservés)REPRODUCTION
La biologie reproductive du sanglier de Java demeure insuffisamment documentée en raison du faible nombre d'études de terrain menées sur des populations sauvages, mais les données disponibles permettent de dégager les grandes lignes de son organisation reproductive. Comme chez la majorité des suidés, la reproduction de l'espèce est potentiellement polycyclique, les femelles pouvant se reproduire plus d'une fois par an dans des conditions environnementales favorables, bien que les données disponibles pour les populations javanaises sauvages restent fragmentaires.
Les mâles atteignent la maturité sexuelle vers l'âge de dix-huit mois, mais n'accèdent généralement aux femelles en âge de se reproduire qu'à un âge plus avancé, lorsqu'ils sont en mesure de s'imposer face aux mâles dominants plus âgés par des affrontements ritualisés mettant en jeu leurs défenses et leurs verrues faciales. Les femelles sont sexuellement matures à partir de huit à douze mois selon les conditions nutritionnelles. La saison de reproduction ne semble pas strictement délimitée à Java, bien que certains auteurs aient signalé une légère augmentation des naissances en fin de saison des pluies, coïncidant avec une abondance accrue des ressources alimentaires.
La gestation dure environ 120 jours. Les portées comptent en général deux à quatre marcassins, bien que des portées allant jusqu'à cinq à six juvéniles aient été signalées en captivité. Avant la mise-bas, la femelle construit un nid de végétaux secs, feuilles et herbes longues, dans une zone abritée et à l'écart des perturbations. Ce comportement de nidification, partagé avec d'autres suidés, assure une protection thermique et mécanique aux nouveau-nés, qui naissent semi-nidicoles et incapables de thermorégulation autonome pendant leurs premières semaines de vie.
Les marcassins présentent le pelage rayé caractéristique du genre Sus pendant leurs trois à quatre premiers mois d'existence. Le sevrage intervient vers trois mois, bien que les jeunes restent associés à leur mère pendant une période plus longue, participant au groupe familial matrilinéaire. Les femelles assurent seules les soins parentaux, les mâles adultes ne jouant aucun rôle direct dans l'élevage des jeunes. La durée de vie en milieu naturel est estimée à environ dix ans, tandis que des individus captifs ont vécu jusqu'à quatorze ans. Dans les populations sauvages soumises à une forte pression cynégétique, la durée de vie effective est considérablement réduite, ce qui fragilise la dynamique reproductive des populations.
© Gideon Lam - iNaturalist
CC-BY-NC (Certains droits réservés)COMPORTEMENT
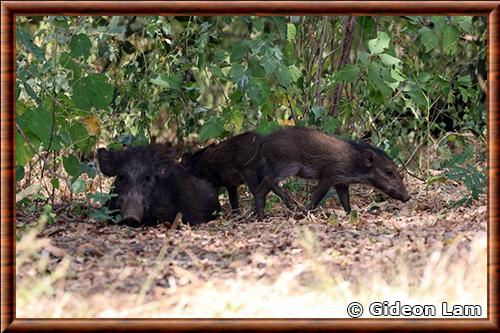
Le sanglier de Java est une espèce dont l'organisation sociale repose sur une structure matrilinéaire similaire à celle observée chez les autres représentants du genre Sus. Les femelles adultes et leurs descendants forment des groupes familiaux stables, appelés sounders dans la littérature anglophone, comprenant généralement deux à six individus, parfois davantage lorsque plusieurs femelles apparentées s'associent temporairement. Ces groupes constituent l'unité sociale fondamentale de l'espèce, assurant une meilleure vigilance collective face aux prédateurs> et une transmission culturelle des connaissances environnementales entre générations.
Les mâles adultes, en revanche, mènent généralement une vie plus solitaire en dehors de la saison de reproduction, à l'exception des jeunes mâles sub-adultes qui peuvent temporairement s'associer en groupes de célibataires. Les domaines vitaux des mâles sont significativement plus étendus que ceux des femelles, ce qui reflète leur stratégie reproductive fondée sur la maximisation des rencontres avec des femelles réceptives. Les déplacements quotidiens peuvent couvrir plusieurs kilomètres, notamment lors des périodes de faible disponibilité alimentaire.
L'activité du sanglier de Java est principalement nocturne et crépusculaire, avec des pics d'activité en début de nuit et à l'aube. Cette organisation temporelle est vraisemblablement une adaptation comportementale à la pression humaine intense, les individus vivant à proximité de zones habitées ayant tendance à accentuer leur caractère nocturne. Pendant les heures les plus chaudes de la journée, les animaux se reposent dans une végétation dense, souvent à proximité d'un point d'eau où ils viennent se vautrer régulièrement. Le vautrage dans la boue est un comportement thermorégulateur et antiparasitaire essentiel : la boue séchée forme un revêtement protégeant la peau des ectoparasites et des morsures d'insectes.
La communication intra-spécifique fait intervenir un répertoire de vocalisations variées (grognements, cris d'alarme, stridulations) ainsi que des signaux olfactifs produits par les glandes cutanées et par le marquage urinaire. Les combats entre mâles rivaux sont ritualisés et impliquent des charges frontales, des affrontements de défenses et des poussées épaule contre épaule. Les verrues faciales des mâles jouent probablement un rôle amortisseur lors de ces confrontations. En situation de danger, le sanglier de Java peut faire preuve d'une agressivité défensive notable, chargeant ses adversaires avec ses défenses. Cependant, la fuite constitue le comportement le plus fréquemment observé.

© Klaus Rudloff - BioLib
All rights reserved (Tous droits réservés)PRÉDATION
La faune prédatrice naturelle du sanglier de Java a été considérablement appauvrie sur l'île de Java au cours des derniers siècles, en parallèle avec le déclin généralisé des grands carnivores dans cet espace insulaire. Historiquement, le sanglier de Java figurait parmi les proies régulières du tigre de Java (Panthera tigris sondaica), grand félin désormais officiellement considéré comme éteint depuis les années 1980. La disparition de ce prédateur de sommet a profondément modifié la dynamique des écosystèmes forestiers javanais, libérant les populations d'ongulés d'une pression de prédation qui avait façonné leur comportement pendant des millénaires.
Parmi les prédateurs encore actifs à Java, le léopard de Java (Panthera pardus melas) est de taille suffisante pour s'attaquer aux jeunes sangliers et aux individus affaiblis. Des observations de terrain dans le parc national d'Ujung Kulon ont confirmé la prédation de sanglier de Java par le léopard de Java, bien que la fréquence de ces événements soit difficile à quantifier précisément dans des habitats forestiers denses. Sur l'île de Bawean, en l'absence de grands félins terrestres, la pression de prédation naturelle exercée sur l'espèce est extrêmement faible, ce qui contribue à la dynamique particulière de cette population insulaire.
D'autres prédateurs de taille plus modeste s'attaquent aux juvéniles et aux marcassins. Le python réticulé (Malayopython reticulatus) et le python molure (Python bivittatus), deux des plus grands serpents du monde présents à Java, représentent une menace réelle pour les jeunes individus dans les zones forestières. Des rapaces de grande taille, notamment l'aigle de Java (Nisaetus bartelsi), endémique et lui-même très menacé, peuvent également prélever des marcassins. La civette palmiste à masque (Paguma larvata) et d'autres petits carnivores forestiers peuvent s'attaquer aux nids et aux très jeunes individus.
Il convient de souligner que la pression de prédation humaine (chasse) constitue de loin la menace prédatrice la plus intense pesant sur les populations actuelles du sanglier de Java, reléguant la prédation naturelle au rang de facteur secondaire. La fragmentation des habitats expose par ailleurs les individus à une vulnérabilité accrue lors de leurs déplacements entre les îlots de forêt résiduelle, pendant lesquels ils traversent des zones agricoles et habitées où ils rencontrent des chiens domestiques errants, des pièges artisanaux et des braconniers.

© Johannes Pfleiderer - BioLib / Zootierliste.de
All rights reserved (Tous droits réservés)MENACES
Le sanglier de Java fait face à un ensemble de menaces convergentes qui ont conduit à un déclin sévère et continu de ses populations au cours du XXe siècle et du début du XXIe siècle, justifiant pleinement son classement en espèce menacée. La destruction et la fragmentation de l'habitat constituent sans conteste le facteur de menace le plus structurant à long terme. Java est l'une des îles les plus densément peuplées et les plus transformées du monde : plus de 85 % de la couverture forestière originelle a été défrichée pour l'agriculture, l'urbanisation et les plantations industrielles. Cette transformation radicale du paysage a réduit l'habitat disponible pour le sanglier de Java à quelques fragments forestiers protégés, géographiquement isolés les uns des autres et soumis à une dégradation continue par exploitation illégale et empiètement agricole.
La chasse représente la deuxième grande catégorie de menace. En tant que suidé, l'espèce fait l'objet d'une chasse intensive pour sa viande dans les communautés rurales non musulmanes de Java, notamment chez les populations hindoues balinaises et certaines communautés chrétiennes. Le braconnage à l'aide de pièges, de chiens de chasse et d'armes à feu persiste même à l'intérieur des zones protégées. Par ailleurs, les individus qui s'aventurent hors des aires protégées pour s'alimenter dans les cultures sont activement pourchassés comme nuisibles par les agriculteurs locaux, indépendamment de toute considération d'ordre alimentaire ou commercial.
La compétition et l'hybridation avec le cochon domestique et ses formes férales constituent une menace génétique souvent sous-estimée. Dans les zones périphériques des parcs nationaux, des croisements entre le sanglier de Java et des cochons domestiques retournés à l'état sauvage ont été signalés, entraînant une dilution génétique de l'espèce et une modification de ses caractéristiques morphologiques et comportementales. La transmission de maladies infectieuses, notamment la fièvre aphteuse, la peste porcine africaine et diverses maladies parasitaires, entre cochons domestiques et sangliers sauvages constitue un risque sanitaire supplémentaire pouvant provoquer des effondrements locaux de populations.
La faible superficie des habitats résiduels entraîne des problèmes de viabilité génétique à long terme pour les populations fragmentées : consanguinité accrue, dérive génétique et perte de diversité allélique fragilisent la capacité d'adaptation de l'espèce face aux changements environnementaux futurs, notamment ceux induits par le changement climatique.

© Klaus Rudloff - BioLib
All rights reserved (Tous droits réservés)CONSERVATION
Le sanglier de Java est considéré comme une espèce menacée d'extinction. Il est inscrit dans la catégorie "En danger" (EN) sur la Liste rouge de l'IUCN. La conservation de cet animal s'inscrit dans un cadre institutionnel et réglementaire globalement favorable, mais confronté à des défis considérables sur le terrain. Au niveau international, l'espèce figure à l'Annexe I de la CITES depuis 1990, ce qui interdit en principe tout commerce international d'individus vivants ou de parties d'animaux issus de populations sauvages.
Les principales zones protégées hébergeant des populations significatives sont le parc national d'Ujung Kulon (120 600 ha), à l'extrémité occidentale de Java, qui constitue le site de conservation le plus important pour l'espèce et accueille également le dernier rhinocéros de Java (Rhinoceros sondaicus) ; le parc national de Baluran (25 000 ha), à l'est de l'île; et le parc national de Meru Betiri (58 000 ha). Sur l'île de Bawean, la réserve naturelle de Bawean (3 831 ha) offre une protection partielle à la sous-espèce Sus verrucosus blouchi, bien que sa superficie limitée et la pression démographique locale constituent des facteurs de vulnérabilité importants.
Les programmes d'élevage en captivité ont été mis en place dans plusieurs zoos indonésiens et étrangers dans l'objectif de maintenir une population de sauvegarde génétiquement diverse. Le Studbook international pour le sanglier de Java, géré sous l'égide de l'EAZA (Association Européenne des Zoos et Aquariums) et de l'AZA (Association of Zoos and Aquariums), recense les individus captifs et coordonne les échanges pour optimiser la diversité génétique. Cependant, le nombre d'individus en captivité reste faible, limitant la portée de ces programmes de sauvegarde.
Des actions de conservation in situ, incluant des programmes de sensibilisation des communautés locales, des patrouilles anti-braconnage renforcées et des études de suivi par piège-photographique, sont menées par diverses ONG indonésiennes en partenariat avec le ministère de l'Environnement et des Forêts. La restauration de corridors forestiers entre les zones protégées fragmentées est identifiée comme une priorité stratégique par le Plan d'Action pour la Conservation de l'Espèce (Species Conservation Action Plan) développé par le groupe de spécialistes des suidés de l'IUCN.
© Klaus Rudloff - BioLib
All rights reserved (Tous droits réservés)TAXONOMIE
L'histoire taxonomique du sanglier de Java repose sur une série de révisions de sa classification formelle au sein du genre Sus, guidées par l'examen de la morphologie crânienne et des spécimens de collection collectés dans l'archipel indonésien. L'espèce a été décrite sur le plan scientifique par le zoologiste allemand Friedrich Boie en 1832, sous le protonyme Sus verrucosus, à partir d'individus récoltés lors des explorations naturalistes menées sur l'île de Java. Quelques années plus tard, en 1840, les naturalistes Salomon Müller et Hermann Schlegel ont publié une analyse comparative détaillée de la faune de la Sonde, décrivant de nouveau l'animal de manière très approfondie et apportant une contribution majeure à la caractérisation ostéologique du taxon, ce qui explique pourquoi l'autorité de l'espèce a parfois été attribuée à Müller en association avec Schlegel dans la littérature ancienne ou secondaire.
Au cours du XIXe siècle et du début du XXe siècle, la position systématique de l'ongulé a fait l'objet de nombreuses controverses taxonomiques. Plusieurs auteurs ont hésité entre le statut d'espèce distincte et celui de simple variante géographique ou sous-espèce du sanglier commun (Sus scrofa), alors nommé Sus scrofa verrucosus. Les travaux majeurs du zoologiste britannique Colin Groves à la fin du XXe siècle ont définitivement clarifié cette situation systématique. Grâce à des analyses craniométriques rigoureuses et à l'étude des structures faciales, Groves a confirmé le statut d'espèce pleine et entière de Sus verrucosus, en démontrant des divergences morphologiques profondes au niveau des os nasaux, de la dentition et des apophyses osseuses qui soutiennent les verrues faciales chez le mâle.
La taxonomie de ce suidé s'est également enrichie par l'identification de formes insulaires distinctes au sein du complexe de la Sonde. Alors que certaines populations des îles environnantes autrefois rattachées à ce taxon ont été réévaluées et élevées au rang d'espèces distinctes, la systématique interne de Sus verrucosus s'articule aujourd'hui autour de deux sous-espèces formellement reconnues par les autorités scientifiques et les bases de données taxinomiques :
- Sus verrucosus verrucosus : Il s'agit de la sous-espèce nominale, historiquement distribuée sur l'ensemble des zones basses et de collines de l'île de Java ainsi que sur l'île voisine de Madura. Ce taxon regroupe les formes présentant la plus grande taille corporelle, des canines particulièrement développées chez les mâles et le massif osseux sous-orbitaire le plus proéminent supportant les verrues faciales.
- Sus verrucosus blouchi : Décrite par Colin Groves en hommage au chercheur et biologiste de la conservation Raleigh Blouch, cette sous-espèce est strictement endémique de la petite île de Bawean, située dans la mer de Java. Elle se distingue de la forme nominale par un gabarit corporel nettement plus réduit, une boîte crânienne plus étroite et des caractéristiques de pelage plus roussâtres, adaptées à l'isolement insulaire restreint de cette île.
CLASSIFICATION
| Nom commun | Sanglier de Java |
| Autre nom | Sanglier verruqueux de Java |
| English name | Java Warty Pig Javan pig |
| Español nombre | Jabalí verrugoso de Java |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Artiodactyla |
| Famille | Suidae |
| Genre | Sus |
| Nom binominal | Sus verrucosus |
| Décrit par | Friedrich Boie |
| Date | 1832 |
Satut IUCN |  |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
Indonesian Biodiversity Discovery and Information System
IUCN SSC Wild Pig Specialist Group
* Bibliographie
Boie, F. (1832). Ueber die von Fr. Boie auf Java gesammelten und beobachteten Säugethiere. Isis von Oken, 1832 : 461–470.
Müller, S. et Schlegel, H. (1840). Over de Zoogdieren van den Indischen Archipel. In: Temminck, C. J., Verhandelingen over de Natuurlijke Geschiedenis der Nederlandsche Overzeesch Bezittingen, door de Leden der Natuurkundige Commissie in Indië en andere Schrijvers, Zoologie : 1–58.
Groves, C. P. (1981). Ancestors for the Pigs: Taxonomy and Phylogeny of the genus Sus. Technical Bulletin No. 3, Department of Prehistory, Research School of Pacific Studies, Australian National University Press, Canberra.
Groves, C. P. et Grubb, P. (1993). The Eurasian Suids (Sus and Babyrousa): Taxonomy and Description. In: Oliver, W. L. R., Pigs, Peccaries and Hippos: Status Survey and Conservation Action Plan. IUCN, Gland, Suisse : 107–111.
Hardjasasmita, H. S. (1987). Taxonomy and phylogeny of the Suidae (Mammalia) in Indonesia. Scripta Geologica, 85 : 1–68.
Kinnaird, M. F. & O'Brien, T. G. (2005). Fast foods of the forest: the influence of figs on primates and hornbills across Wallace's line. In: Dew, J. L. & Boubli, J. P. (eds.), Tropical Fruits and Frugivores. Springer, Dordrecht.
Semiadi, G. (2005). General biology of Javan warty pig and its status in Indonesia. Biota, 10(2), 82–90.
Sanderson, J. G. & Trolle, M. (2005). Monitoring elusive mammals: unattended cameras reveal secrets of some of the world's wildest places. American Scientist, 93(2), 148–155.
Meijaard, E., d'Huart, J. P., & Oliver, W. L. R. (2011). Family Suidae. Handbook of the Mammals of the World, Vol. 2. Lynx Edicions, Barcelona.
Jepson, P., Jarvie, J. K., MacKinnon, K., & Monk, K. A. (2001). The end for Indonesia's lowland forests? Science, 292(5518), 859–861.
Barlow, J., Gardner, T. A., Araujo, I. S., et al. (2007). Quantifying the biodiversity value of tropical primary, secondary, and plantation forests. PNAS, 104(47), 18555–18560.
Larson, G. & Fuller, D. Q. (2014). The evolution of animal domestication. Annual Review of Ecology, Evolution, and Systematics, 45, 115–136.
Meijaard, E. & Groves, C. P. (2002). The geographic distribution of the Sus barbatus species group. Asian Wild Pig News, 2(2), 20–28.
MacKinnon, J. R. & MacKinnon, K. (1986). Review of the Protected Areas System in the Indo-Malayan Realm. IUCN/UNEP, Gland.
Whitten, T., Soeriaatmadja, R. E., & Afiff, S. A. (1996). The Ecology of Java and Bali. Periplus Editions, Singapore.
Curran, L. M. & Leighton, M. (2000). Vertebrate responses to spatiotemporal variation in seed production of mast-fruiting Dipterocarpaceae. Ecological Monographs, 70(1), 101–128.
Ickes, K., Paciorek, C. J., & Thomas, S. C. (2005). Impacts of nest construction by native pigs (Sus scrofa) on lowland Malaysian rain forest saplings. Ecology, 86(6), 1447–1458.
Semiadi, G. (2005). General biology of Javan warty pig (Sus verrucosus) and its status in Indonesia. Biota, 10(2), 82–90.
Boitani, L., Mattei, L., Nonis, D., & Corsi, F. (1994). Spatial and activity patterns of wild boars in Tuscany, Italy. Journal of Mammalogy, 75(3), 600–612.
Oliver, W. L. R. (ed.) (1993). Pigs, Peccaries, and Hippos: Status Survey and Conservation Action Plan. IUCN/SSC Pigs and Peccaries Specialist Group. IUCN, Gland, Switzerland.