
Civette de Sumatra (Paradoxurus musangus)
La civette de Sumatra (Paradoxurus musangus) est un petit mammifère carnivore appartenant à la famille des Viverridae et originaire d'Asie du Sud-Est. Longtemps assimilée à une simple sous-espèce de la civette palmiste commune (Paradoxurus hermaphroditus), elle a récemment été élevée au rang d'espèce à part entière grâce aux progrès des analyses génétiques et morphologiques. Cette petite civette arbore un pelage caractéristique et joue un rôle fonctionnel majeur dans la régénération des écosystèmes forestiers tropicaux à travers la dispersion des graines. Célèbre mondialement pour son implication involontaire dans la production du café kopi luwak, l'animal fait l'objet d'une attention accrue de la part de la communauté scientifique en raison des pressions anthropiques qui pèsent sur ses populations sauvages.
© duke_n - iNaturalist
 CC-BY-NC (Certains droits réservés)
 DESCRIPTION
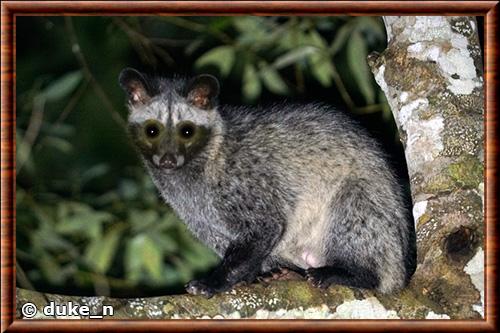
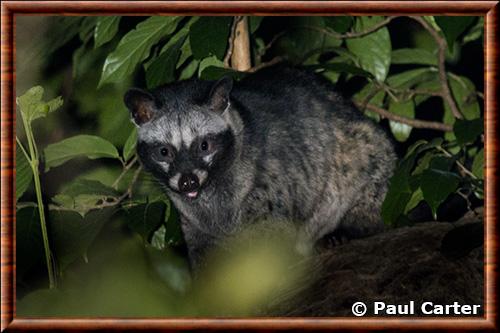
La civette de Sumatra présente une silhouette allongée, souple et relativement trapue, portée par des membres courts adaptés à la locomotion dans la strate arborée. Sa longueur tête-corps oscille généralement entre quarante-huit et cinquante-cinq centimètres, tandis que sa queue non annelée, presque aussi longue que le tronc, mesure de quarante à cinquante centimètres. Le poids adulte varie couramment de deux à cinq kilogrammes, sans dimorphisme sexuel marqué au niveau de la stature globale. Le pelage, plutôt rêche et fourni, affiche une coloration de fond allant du gris brunâtre au brun foncé. Sur le dos s'étirent habituellement trois rangées longitudinales de rayures sombres plus ou moins discontinues, accompagnées de taches noires irrégulières réparties sur les flancs. Les extrémités des pattes, les oreilles arrondies, le museau pointu ainsi que la majeure partie distale de la queue revêtent une teinte noire uniforme.
La face arbore un motif contrasté caractéristique servant à l'identification visuelle. Un bandeau sombre traverse la région oculaire et rejoint la base du museau, contrastant nettement avec des taches blanchâtres ou gris clair situées sur le front, sous chaque oeil et sur les joues. La morphologie crânienne et dentaire révèle des adaptations prononcées à un régime mixte dominé par les végétaux mous. Comparativement aux taxons apparentés du continent asiatique, les molaires et prémolaires montrent des tubercules plus émoussés et des surfaces broyeuses élargies, réduisant la fonction strictement tranchante des carnassières typiques des carnivores terrestres. Les pattes disposent de griffes semi-rétractiles acérées et de coussinets plantaires nus favorisant une adhérence optimale sur l'écorce lisse des troncs verticaux.
Sous la queue, la région périnéale abrite des glandes odoriférantes spécialisées capables de sécréter une substance musquée huileuse à l'odeur pénétrante. Cette sécrétion intervient à la fois dans le marquage territorial olfactif et comme mécanisme de défense chimique lorsqu'un individu se sent menacé. Par ailleurs, l'ultrastructure des poils de jarre et la géométrie du palais permettent aux spécialistes de distinguer finement ce taxon des autres représentants du genre Paradoxurus.
© Paul Carter - iNaturalist
CC-BY-NC (Certains droits réservés)HABITAT
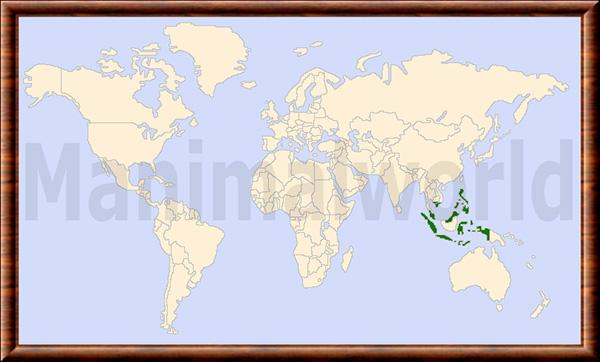
L'aire de répartition indigène de la civette de Sumatra couvre une vaste portion de l'Asie du Sud-Est continentale et insulaire. Sur le continent, l'espèce occupe la péninsule Malaise, Singapour, le sud de la Thaïlande, une partie du Myanmar ainsi que le Vietnam, généralement au sud de l'isthme de Kra qui agit comme une frontière biogéographique majeure. Dans l'archipel indonésien, elle est naturellement présente sur les grandes îles de Sumatra, Java et Bali, ainsi que sur plusieurs îles satellites environnantes telles que Bangka, Belitung et Nias. Au fil des siècles, les déplacements maritimes humains ont également entraîné son introduction volontaire ou accidentelle sur diverses îles des Petites îles de la Sonde, notamment Flores, Roti, Sumba, Timor et jusqu'aux Moluques et à Sulawesi.
Sur le plan altitudinal, ce mammifère privilégie les régions de plaine et les collines basses, évoluant principalement depuis le niveau de la mer jusqu'à environ mille mètres d'altitude. Dans les zones continentales où son aire recoupe celle de la civette palmiste commune, une ségrégation écologique semble s'opérer, le taxon sumatranais occupant préférentiellement les étages forestiers inférieurs tandis que son congénère investit les reliefs plus élevés.
Sa plasticité écologique remarquable lui permet de coloniser une grande diversité de milieux. Elle fréquente aussi bien les forêts tropicales humides primaires que les forêts secondaires dégradées, les mangroves littorales, les zones arbustives et les mosaïques agroforestières. Trois paramètres structurels conditionnent toutefois sa présence durable dans un paysage donné. L'animal exige une continuité suffisante de la canopée pour assurer ses déplacements aériens, la disponibilité régulière d'arbres fructifères tout au long de l'année, ainsi que des cavités abritées pour le repos diurne. En milieu anthropisé, elle s'adapte aisément aux plantations de palmiers à huile, aux vergers, aux parcs urbains et même aux combles des habitations humaines, évitant uniquement les vastes étendues dénudées dépourvues de couvert végétal.
© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
ÉCOLOGIE
Le régime alimentaire de la civette de Sumatra se caractérise par un omnivorisme opportuniste à très forte dominance frugivore. Les analyses coprologiques démontrent que les fruits et les graines représentent plus de 90% de la fréquence d'occurrence alimentaire annuelle, quelle que soit la saison. Elle consomme une grande variété de baies sauvages, de figues, de fruits de palmiers, de mangues ou de bananes cultivées. Ce comportement en fait un vecteur de dispersion de graines essentiel pour la dynamique forestière, car les semences ingérées traversent le tractus digestif intactes et sont déposées loin de l'arbre mère avec un taux de germination souvent amélioré. En complément de cet apport végétal, l'animal capture des invertébrés comme les coléoptères, les orthoptères, les myriapodes et les mollusques, ainsi que de petits vertébrés incluant des rongeurs, des oisillons, des geckos et des amphibiens.
Le comportement quotidien suit un rythme strictement nocturne et crépusculaire. Durant la journée, l'individu demeure dissimulé dans des trous d'arbres matures, d'épais enchevêtrements de lianes, des crevasses rocheuses ou sous les toitures en zone périurbaine. À la tombée de la nuit, il entame ses déplacements solitaires en utilisant sa longue queue comme balancier sur les branches. Les adultes maintiennent des domaines vitaux individuels marqués par des dépôts fécaux en des points précis et par des sécrétions glandulaires. Les mâles couvrent généralement des superficies nettement plus vastes que celles des femelles, englobant souvent les territoires de plusieurs partenaires potentielles.
La reproduction ne présente pas de saisonnalité stricte sous les climats équatoriaux constants, permettant jusqu'à deux portées annuelles. Après une gestation d'environ deux mois, la femelle met bas dans un abri sécurisé une portée comptant habituellement deux à quatre petits. Les nouveau-nés, pesant près de quatre-vingts grammes et naissant les yeux clos, dépendent intégralement des soins maternels durant les premières semaines. Le sevrage intervient vers deux mois et l'indépendance complète est acquise autour de quatre à six mois, la maturité sexuelle étant atteinte vers l'âge d'un an à dix-huit mois.
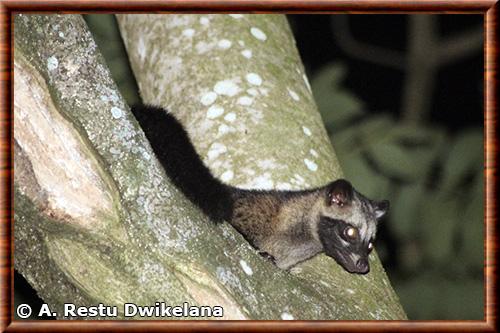
© A. Restu Dwikelana - iNaturalist
CC-BY-NC (Certains droits réservés)MENACES ET CONSERVATION
Bien que l'espèce fasse preuve d'une tolérance notable face aux modifications de son environnement, ses populations subissent des pressions croissantes à travers toute l'Asie du Sud-Est. La déforestation massive liée à l'expansion des monocultures industrielles de palmiers à huile et d'hévéas fragmente les massifs forestiers continus et réduit la disponibilité des arbres à cavités indispensables à sa nidification. En parallèle, sa propension à fréquenter les vergers et les cultures vivrières entraîne des conflits directs avec les agriculteurs, qui la perçoivent fréquemment comme un ravageur de récoltes et procèdent à son piégeage ou à son empoisonnement. En milieu urbain et périurbain, les collisions routières constituent également une cause non négligeable de mortalité directe lors de ses déplacements nocturnes au sol.
La menace la plus emblématique demeure toutefois la capture intensive dans le milieu naturel pour alimenter l'industrie du kopi luwak. Ce café de luxe est élaboré à partir de cerises de caféier ingérées, partiellement fermentées par les sucs digestifs de l'animal, puis récoltées dans ses déjections. Face à la demande mondiale lucrative, des dizaines de milliers d'individus sauvages sont braconnés chaque année pour être maintenus en captivité dans des cages exiguës et nourris exclusivement de grains de café, provoquant une mortalité élevée et un prélèvement insoutenable sur les populations forestières. À cela s'ajoute le commerce illégal de viande de brousse et d'animaux de compagnie exotiques dans plusieurs pays asiatiques.
Sur le plan réglementaire, l'évaluation globale de l'IUCN intègre encore fréquemment ce taxon au sein du complexe élargi de la civette palmiste commune, classé en "Préoccupation mineure" en raison de sa vaste distribution et de son adaptabilité. Néanmoins, cette classification globale masque des déclins locaux préoccupants. L'espèce bénéficie de protections légales nationales partielles en Indonésie, en Malaisie et à Singapour, mais l'application des lois contre le braconnage reste insuffisante face à la rentabilité du commerce clandestin et des fermes à café.
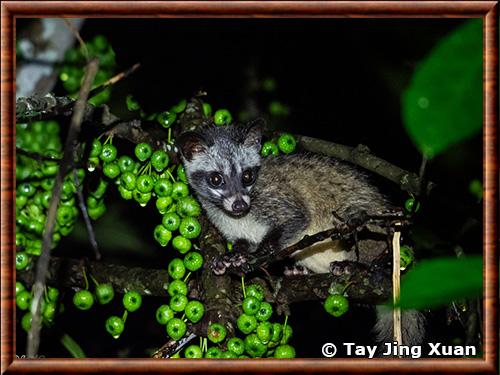
© Tay Jing Xuan - iNaturalist
CC-BY-NC (Certains droits réservés)TAXONOMIE
L'histoire classificatoire de la civette de Sumatra illustre la complexité des radiations évolutives des petits carnivores insulaires d'Asie du Sud-Est. Pendant près de deux siècles, l'ensemble des civettes palmistes asiatiques à pelage grisâtre et rayé a été regroupé au sein d'une seule et même espèce polytypique à très large répartition géographique. Cette conception unitaire masquait une diversité morphologique considérable, ayant conduit les naturalistes des XIXe et XXe siècles à décrire plus d'une trentaine de sous-espèces géographiques distinctes à travers le sous-continent indien, l'Indochine et les archipels de la Sonde et des Philippines. Les variations observées portaient principalement sur l'intensité de la pigmentation du pelage, la netteté des bandes dorsales, la taille corporelle et certaines proportions crâniennes.
Au début du XXIe siècle, l'essor de la phylogénie moléculaire a profondément remis en question cette architecture taxonomique traditionnelle. Les premières analyses génétiques basées sur le séquençage de l'ADN mitochondrial, notamment le gène du cytochrome b et la région de contrôle, ont révélé l'existence de divergences profondes au sein des populations continentales et insulaires. Ces travaux préliminaires ont mis en évidence une rupture phylogéographique majeure située au niveau de l'isthme de Kra, dans la péninsule Thaï-Malaise, séparant nettement les lignées évolutives du nord de celles peuplant la région de la Sonde.
L'étape décisive vers la réhabilitation du statut spécifique de la forme sumatranaise est survenue au milieu des années 2010 grâce aux recherches approfondies menées par Géraldine Veron et ses collaborateurs. En combinant l'étude de marqueurs génétiques mitochondriaux et nucléaires, comme l'intron 7 du gène du fibrinogène bêta, avec un examen rigoureux des caractères morphologiques crâniens, dentaires et pileux sur plus d'une centaine de spécimens muséologiques, cette équipe a démontré que l'ancien complexe spécifique regroupait en réalité trois lignées évolutives indépendantes méritant le rang d'espèce à part entière.
Cette révision systématique a abouti à restreindre le taxon septentrional aux régions indiennes et indochinoises, à élever la lignée de Bornéo, des Philippines et des îles Mentawai au rang d'espèce propre, et à reconnaître officiellement la civette de Sumatra en tant qu'espèce valide couvrant le sud de la péninsule Malaise, Sumatra, Java et les îles voisines. L'histoire biogéographique reconstituée par ces analyses suggère que les fluctuations répétées du niveau marin durant le Pléistocène ont tour à tour connecté et isolé les terres émergées du plateau de la Sonde, favorisant ainsi la spéciation allopatrique de ce clade méridional.
Au sein même de cette espèce nouvellement délimitée, la structure génétique et morphologique demeure hétérogène. Les données phylogénétiques actuelles soutiennent la reconnaissance d'au moins deux sous-espèces principales :
- Paradoxurus musangus musangus, la sous-espèce nominale peuplant Sumatra, la péninsule Malaise et Singapour.
- Paradoxurus musangus javanicus, présente à Java et Bali.
Par ailleurs, les études génétiques ont confirmé que les populations établies plus à l'est sur les îles de la Wallacea résultent de translocations humaines historiques plutôt que d'une dispersion naturelle ancienne. Bien que certaines bases de données internationales conservent encore par prudence l'ancienne classification globale pour des raisons de gestion conservatoire, les référentiels taxonomiques modernes adoptent désormais cette partition spécifique.
CLASSIFICATION
| Nom commun | Civette de Sumatra |
| English name | Southern Palm Civet Sumatran Palm Civet |
| Español nombre | Civeta de las palmeras de Sonda |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Feliformia |
| Famille | Viverridae |
| Sous-famille | Paradoxurinae |
| Genre | Paradoxurus |
| Nom binominal | Paradoxurus musangus |
| Décrit par | Stamford Raffles |
| Date | 1821 |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Raffles, T. S. (1821). Descriptive catalogue of a zoological collection made on account of the honourable East India Company, in the island of Sumatra and its vicinity. Transactions of the Linnean Society of London.
Jennings, A. P., & Veron, G. (2009). Family Viverridae (Civets, genets and oyans). In D. E. Wilson & R. A. Mittermeier (Eds.), Handbook of the Mammals of the World. Volume 1: Carnivores (pp. 174-232). Lynx Edicions, Barcelona.
Francis, C. M. (2019). A Field Guide to the Mammals of South-East Asia (2nd ed.). Bloomsbury Wildlife, London.
Veron, G., & Jennings, A. P. (2017). Javan mongoose or small Indian mongoose – who is where? Mammalian Biology, 87, 62-70.
Nakabayashi, M., Ahmad, A. H., & Kohshima, S. (2016). Predicted distribution of the common palm civet Paradoxurus hermaphroditus (Mammalia: Carnivora: Viverridae) on Borneo. Raffles Bulletin of Zoology, 64, 152-158.
Payne, J., & Francis, C. M. (2005). A Field Guide to the Mammals of Borneo. The Sabah Society, Kota Kinabalu.
Nakashima, Y., Inoue, E., Inoue-Murayama, M., & Sukor, J. R. A. (2010). Functional uniqueness of a small carnivore as seed dispersal agents: a case study of the common palm civets in the Tabin Wildlife Reserve, Sabah, Malaysia. Oecologia, 164(3), 721-730.
Tsuji, Y., Prayitno, B., Nugraha, R. T. P., & Suryobroto, B. (2019). Food habits of the common palm civet (Paradoxurus hermaphroditus) in Pangandaran Nature Reserve, West Java, Indonesia. Mammal Study, 44(2), 131-136.
Joshi, A. R., Smith, J. L. D., & Cuthbert, F. J. (1995). Influence of food distribution and predation pressure on spacing behavior in palm civets. Journal of Mammalogy, 76(4), 1205-1212.
D'Cruze, N., Toole, J., Mansell, K., & Schmidt-Burbach, J. (2014). What is the true cost of the world's most expensive coffee? Oryx, 48(2), 170-171.
Shepherd, C. R. (2012). Observations of small carnivores in Jakarta wildlife markets, Indonesia, with notes on trade in Javan Ferret Badger Melogale orientalis and on the increasing demand for Common Palm Civet Paradoxurus hermaphroditus for civet coffee production. Small Carnivore Conservation, 47, 38-41.
Veron, G., Patou, M.-L., Tóth, M., Goonatilake, M., & Jennings, A. P. (2015). How many species of Paradoxurus civets are there? New insights from India and Sri Lanka. Journal of Zoological Systematics and Evolutionary Research, 53(2), 161-174.
Patou, M.-L., Wilting, A., Gaubert, P., Esselstyn, J. A., Cruaud, C., Jennings, A. P., Fickel, J., & Veron, G. (2010). Evolutionary history of the Paradoxurus palm civets – a new model for Asian biogeography. Journal of Biogeography, 37(11), 2077-2097.