
Civette de Malaisie (Viverra tangalunga)
La civette de Malaisie (Viverra tangalunga) est un mammifère carnivore de taille moyenne appartenant à la famille des Viverridae. Décrite scientifiquement par le zoologiste britannique John Edward Gray en 1832, cette espèce emblématique des forêts d'Asie du Sud-Est se distingue par son pelage tacheté, sa crinière dorsale sombre et sa queue annelée. Principalement terrestre et nocturne, ce prédateur discret joue un rôle écologique fondamental dans les écosystèmes tropicaux insulaires et péninsulaires, contribuant activement à la régulation des populations de petits vertébrés et d'invertébrés ainsi qu'à la dissémination des graines. Sa remarquable plasticité écologique lui permet d'occuper aussi bien les forêts primaires denses que les milieux secondaires perturbés à proximité des implantations humaines ce qui en fait un sujet précieux pour comprendre la réponse des mammifères tropicaux face à la transformation des paysages.
© Ritaya - iNaturalist
 CC-BY-NC (Certains droits réservés)
 DESCRIPTION
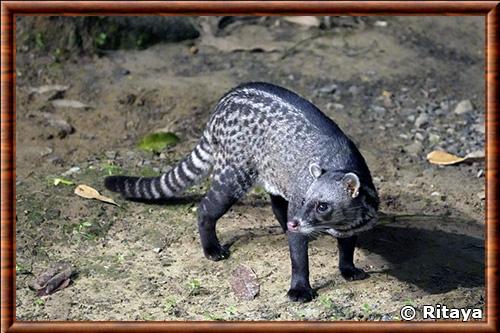
La civette de Malaisie est un viverridé de taille moyenne, au corps allongé et au profil bas, porté par des membres relativement courts. La longueur tête-corps s'établit généralement entre 55 et 70 centimètres, à laquelle s'ajoute une queue de 20 à 35 centimètres, soit environ la moitié de la longueur du corps. Le poids varie le plus souvent de 2 à 5 kilogrammes, les mâles adultes dépassant légèrement les femelles, sans que le dimorphisme sexuel soit très marqué.
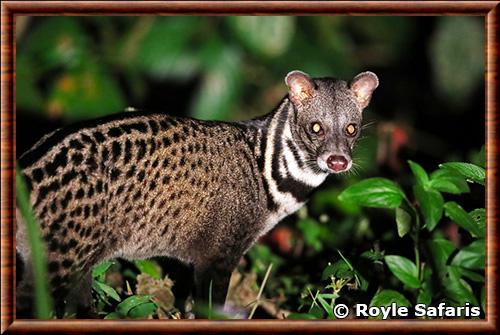
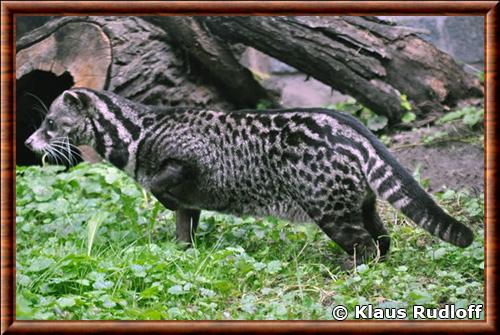
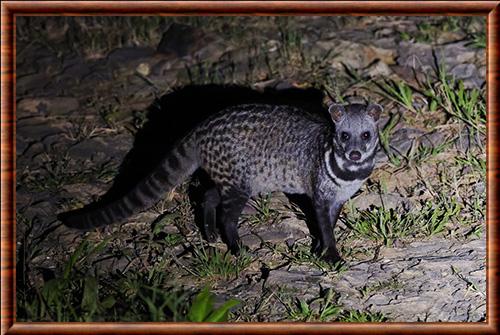
Le pelage, rude et assez court, présente une teinte de fond allant du gris-brun au fauve jaunâtre, plus claire sur les flancs et sur le ventre. Une crête dorsale de poils noirs, qui peut se redresser lorsque l'animal est excité ou menacé, court de la nuque jusqu'à la base de la queue. Les flancs portent des taches sombres, petites et nombreuses, souvent disposées en rangées irrégulières et nettement moins contrastées que chez la grande civette indienne (Viverra zibetha); chez certains individus, elles s'estompent au point de devenir presque invisibles. La queue, sombre sur l'essentiel de sa longueur, montre des annelures faibles ou absentes, caractère qui aide à la distinguer des espèces voisines, dont les anneaux alternés noirs et blancs sont beaucoup plus nets.
La tête est allongée, terminée par un museau pointu et surmontée d'oreilles arrondies de taille moyenne. Les yeux, assez petits, possèdent une pupille elliptique adaptée à la vision crépusculaire et nocturne. De longues vibrisses sensibles encadrent le museau et participent à l'exploration tactile du sol. Le masque facial est peu contrasté, et la gorge comme le cou ne présentent pas les larges bandes noires et blanches caractéristiques de la grande civette indienne, ce qui constitue l'un des critères de terrain les plus utiles.
Les pattes, sombres, se terminent par cinq doigts munis de griffes semi-rétractiles, plus adaptées à la fouille de la litière qu'à l'escalade, bien que l'animal sache grimper à l'occasion. La démarche est souple et silencieuse. Comme chez les autres civettes, une volumineuse glande périnéale, plus développée chez le mâle, sécrète un produit odorant et épais utilisé pour le marquage du territoire; cette sécrétion musquée a été exploitée en parfumerie chez d'autres espèces du groupe.
Le crâne est allongé, à rostre étroit, et la formule dentaire comprend quarante dents : trois incisives, une canine, quatre prémolaires et deux molaires de chaque côté des deux mâchoires. Les carnassières restent présentes mais peu spécialisées, la dentition étant adaptée à un régime omnivore où l'on broie davantage que l'on ne tranche. L'identification repose finalement sur la combinaison de la taille, de la crête dorsale, de l'absence de bandes cervicales marquées et de la faiblesse des annelures caudales.
© Royle Safaris - iNaturalist
CC-BY-NC (Certains droits réservés)HABITAT
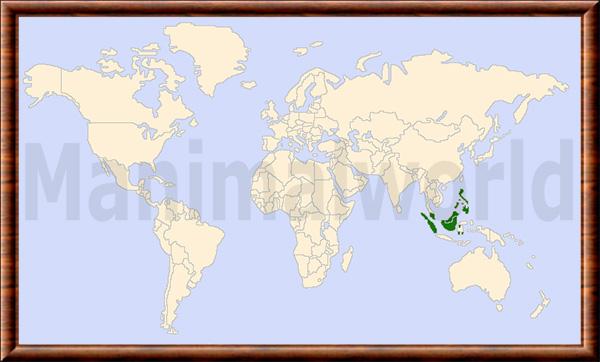
L'aire de répartition naturelle de civette de Malaisie correspond à la région biogéographique de la Sonde. L'espèce occupe la partie méridionale de la péninsule malaise, depuis le sud de la Thaïlande jusqu'à la Malaisie péninsulaire et à Singapour, ainsi que Sumatra avec plusieurs îles voisines, dont Bangka, Belitung et l'archipel de Riau. Elle est largement présente à Bornéo, où elle se rencontre dans le Sabah, le Sarawak, le Brunei et les provinces indonésiennes du Kalimantan. Elle semble en revanche absente de Java, ce qui contraste avec d'autres viverridés de la région.
À l'est de cette aire, des populations existent à Sulawesi, dans plusieurs îles des Moluques et dans le sud des Philippines, notamment à Mindanao et dans des îles proches. L'origine de ces populations est discutée, mais de nombreux auteurs, depuis les travaux de Groves sur la faune de Sulawesi et ceux de Heaney sur la biogéographie des mammifères d'Asie du Sud-Est, les considèrent comme issues d'introductions par l'homme, volontaires ou accidentelles, à une époque probablement ancienne. Le transport de civettes vivantes à bord d'embarcations, pour leur sécrétion musquée, pour la chasse ou comme animaux de compagnie, est l'explication la plus souvent avancée, mais elle reste difficile à vérifier sans données génétiques ou paléontologiques détaillées.
Sur le plan altitudinal, l'espèce est avant tout un habitant des plaines et des basses collines. Des observations la signalent toutefois à plus de mille mètres, jusqu'à environ 1 500 mètres dans certains massifs de Bornéo et de la péninsule, mais son abondance semble diminuer nettement avec l'altitude.
Elle fréquente les forêts denses humides de plaine, notamment les forêts à diptérocarpacées, les forêts secondaires, les forêts exploitées de longue date, les forêts marécageuses et les lisières de mangrove. Sa tolérance aux perturbations est remarquableénbsp;: elle est régulièrement observée dans les plantations de palmiers à huile et d'hévéas, les vergers, les jardins et même les zones périurbaines, comme à Singapour, où elle subsiste dans des fragments boisés enclavés. Cette plasticité tient à la nature omnivore et terrestre de l'animal, qui n'est pas lié à la canopée et trouve sa nourriture dans la litière.
Les études par pièges photographiques menées à Bornéo, dans la péninsule malaise et à Sumatra la détectent fréquemment, souvent parmi les petits carnivores les plus enregistrés. Dans les forêts exploitées de Bornéo, des travaux comme ceux de Heydon et Bulloh indiquent que l'espèce semble peu affectée, voire favorisée, alors que les ccivettes plus spécialisées, arboricoles ou inféodées aux forêts primaires, déclinent. Les densités restent toutefois mal connues et varient selon les méthodes employées.
© Manimalworld
 CC-BY-NC-SA (Certains droits réservés)
ALIMENTATION
La civette de Malaisie est un omnivore opportuniste qui se nourrit essentiellement au sol. Les connaissances sur son régime reposent surtout sur des analyses de fèces et de contenus stomacaux, ainsi que sur des observations par pièges photographiques et radiopistage. Elles décrivent un régime très diversifié, dont la composition varie selon la saison, l'habitat et la disponibilité des ressources.
Les invertébrés forment une part importante de l'alimentation. Coléoptères, fourmis, termites, orthoptères, larves d'insectes, myriapodes, vers de terre, escargots et crabes d'eau douce ou terrestres sont consommés régulièrement, et leur capture demande peu d'énergie lorsqu'ils abondent dans la litière. Cette composante est probablement stable tout au long de l'année et constitue une ressource de base lorsque les fruits se raréfient.
Les vertébrés complètent le régime sans en être la composante dominante. Petits rongeurs, musaraignes, lézards, grenouilles, jeunes serpents, poissons piégés dans des mares résiduelles, oisillons et oeufs d'oiseaux nichant au sol sont capturés, tandis que les charognes sont exploitées à l'occasion. La civette ne chasse pas à vue sur de longues distances mais fouille systématiquement le sol, et ses captures résultent davantage de rencontres que de poursuites.
Les fruits tiennent une place notable, surtout lors des fructifications massives des forêts à diptérocarpacées, qui surviennent à intervalles irréguliers en Asie du Sud-Est. Figues, fruits tombés et baies charnues sont consommés, et des graines intactes sont régulièrement retrouvées dans les fèces. L'espèce participe vraisemblablement à la dispersion de certaines plantes, même si son rôle écologique reste moins étudié que celui d'autres viverridés plus frugivores.
Dans les paysages transformés, l'espèce exploite des ressources d'origine humaine : déchets de campements et de villages, restes alimentaires, volailles mal protégées, fruits de vergers. Cette flexibilité contribue à son maintien là où d'autres carnivores ont disparu, mais elle l'expose aussi à des conflits avec les éleveurs.
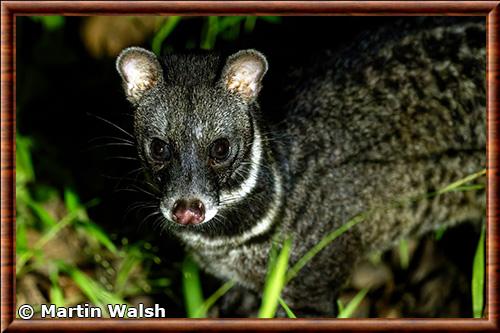
© Martin Walsh - iNaturalist
CC-BY-NC (Certains droits réservés)REPRODUCTION
La biologie de la reproduction de civette de Malaisie reste mal documentée, en grande partie parce que l'espèce est discrète, solitaire et difficile à suivre dans le milieu naturel. Les informations disponibles proviennent d'observations fortuites, de rares données sur des animaux captifs et de comparaisons avec d'autres espèces du genre, notamment la grande civette indienne, et doivent donc être interprétées avec prudence.
Les informations disponibles indiquent qu'une femelle peut mettre au monde de un à quatre petits par portée et qu'elle est susceptible de produire jusqu'à deux portées au cours d'une année. Ces valeurs doivent toutefois être considérées comme des estimations générales, car les observations directes de la reproduction dans la nature sont relativement limitées. Le nombre de jeunes peut probablement varier selon l'âge de la femelle, son état corporel et les conditions alimentaires. Dans un environnement où les ressources sont abondantes, la disponibilité énergétique pourrait favoriser une reproduction plus régulière.
La gestation est généralement estimée à environ 70 à 75 jours. La mise bas a lieu dans un endroit protégé, notamment dans une végétation dense ou dans une cavité au sol. Ce choix réduit probablement l'exposition des nouveau-nés aux prédateurs et aux perturbations. Les jeunes naissent déjà couverts de poils, mais leurs yeux sont fermés à la naissance. Ils restent donc fortement dépendants de leur mère pendant les premières semaines. Le choix d'un site de mise bas discret est particulièrement important chez une espèce dont les jeunes sont incapables de suivre immédiatement leur mère lors de ses déplacements.
Le sevrage commence autour du premier mois, lorsque les petits peuvent progressivement compléter le lait maternel par des aliments solides. À mesure qu'ils grandissent, ils doivent acquérir les compétences nécessaires à la recherche de nourriture, à l'identification des proies et à l'utilisation des refuges. Chez une espèce essentiellement solitaire, l'apprentissage auprès de la mère constitue probablement une période déterminante avant l'indépendance. La durée précise de cette phase reste cependant insuffisamment documentée dans la nature.
Les données démographiques disponibles donnent une durée de génération d'environ 5,9 ans. La longévité maximale dans la nature reste mal connue, tandis qu'une longévité moyenne d'environ douze ans a été rapportée en captivité. La reproduction de la civette de Malaisie doit donc être considérée dans le contexte d'un petit carnivore dont la dynamique de population dépend probablement davantage de la survie des adultes et de la disponibilité d'habitats forestiers que d'un très fort potentiel reproducteur. La destruction de sites de repos ou de mise bas, la mortalité routière et la persécution locale peuvent ainsi avoir des effets disproportionnés dans les populations soumises à une forte pression humaine.
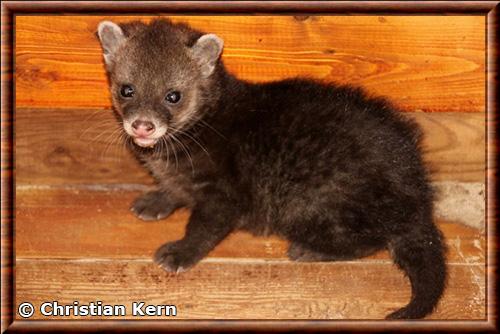
© Christian Kern - BioLib
 All rights reserved (Tous droits réservés)
COMPORTEMENT
La civette de Malaisie est une espèce solitaire et essentiellement nocturne. Les études par radiopistage menées dans la vallée de Danum, à Bornéo, notamment celles de Colon, montrent une activité concentrée entre le crépuscule et l'aube, avec un pic dans la première moitié de la nuit. Les individus passent la journée au repos dans des abris variés : végétation dense, cavités du sol, troncs creux ou amas de lianes.
Le domaine vital s'étend sur des surfaces relativement vastes pour un animal de cette taille, de l'ordre de plusieurs dizaines à plusieurs centaines d'hectares selon le sexe, l'habitat et la saison. Les chevauchements entre individus du même sexe semblent limités, tandis que les domaines des mâles recoupent ceux de plusieurs femelles. Les comparaisons entre forêt exploitée et forêt intacte suggèrent que l'espèce ajuste ses déplacements à la distribution des ressources plutôt qu'à la structure du couvert.
La communication repose avant tout sur l'olfaction. La civette dépose la sécrétion de sa glande périnéale sur des supports surélevés, troncs, racines ou pierres, et utilise aussi son urine et ses fèces, parfois regroupées sur des sites fréquentés de façon répétée. Ces marques renseignent sans doute sur l'identité, le sexe et l'état reproducteur de l'émetteur, et participent à l'organisation spatiale de la population. Les signaux vocaux sont discrets : grognements, souffles et cris d'alarme émis en situation de menace. Face à un danger, l'animal hérisse la crête dorsale pour paraître plus grand, retrousse les lèvres et peut libérer sa sécrétion odorante. Sa première réaction reste toutefois la fuite ou l'immobilité dans la végétation.
Les contacts sociaux se limitent pour l'essentiel à l'accouplement et à l'élevage des jeunes. Des rencontres entre individus sont parfois enregistrées par pièges photographiques, souvent de façon brève et sans agressivité apparente, ce qui suggère des mécanismes d'évitement efficaces. La dispersion des jeunes après leur émancipation n'a pas été documentée.
Dans les zones modifiées, l'espèce montre une grande tolérance à la présence humaine, visitant les abords des campements et des habitations. Cette audace apparente reste toutefois prudente, les animaux évitent généralement les zones très fréquentées pendant la journée et adaptent leur rythme d'activité aux perturbations, comme l'ont montré plusieurs études par pièges photographiques.
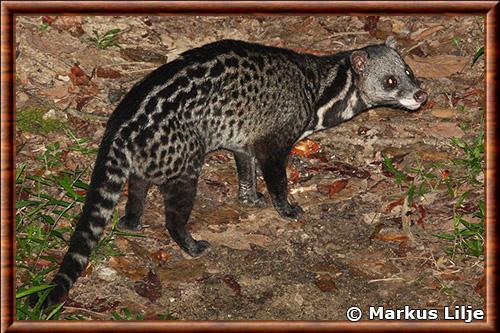
© Markus Lilje - iNaturalist
CC-BY-NC (Certains droits réservés)PRÉDATION
Les données directes sur la prédation de la civette de Malaisie sont rares, et la plupart des informations sont déduites de la coexistence avec de grands prédateurs et de comparaisons avec d'autres petits carnivores. Aucun prédateur spécialisé n'est connu, et la civette fait partie, au même titre que de nombreux rongeurs et petits ongulés, des proies potentielles de carnivores opportunistes.
Parmi les grands félins, le tigre à Sumatra (Panthera tigris sumatrae) et dans la péninsule malaise, la panthère nébuleuse de Sonde (Neofelis diardi) à Bornéo et à Sumatra, ainsi que le léopard (Panthera pardus) dans la péninsule malaise sont tous capables de capturer une civette de cette taille. L'espèce ne constitue toutefois vraisemblablement qu'une part modeste de leur régime, dominé par des proies plus grosses, et les rares données de régime disponibles ne permettent pas de quantifier ce prélèvement.
D'autres prédateurs potentiels incluent le dhole (Cuon alpinus) à Sumatra et dans la péninsule, le python réticulé (Malayopython reticulatus), capable d'avaler des mammifères de plusieurs kilogrammes, et, près des cours d'eau et des mangroves, le crocodile marin (Crocodylus porosus). Les jeunes, plus vulnérables, peuvent aussi être pris par de grands rapaces, ainsi que par des varans de grande taille.
Les chiens domestiques, errants ou accompagnant les chasseurs, constituent un autre prédateur de poids dans les zones habitées, et ils peuvent également transmettre des maladies. L'effet réel de ces espèces introduites sur les populations reste à mesurer.
Face à ces risques, la civette dispose de plusieurs défenses : activité nocturne, pelage cryptique, comportement discret, changements fréquents de gîtes, fuite rapide et sécrétion odorante dissuasive. L'exposition aux prédateurs naturels varie fortement selon les régions : Sumatra et la péninsule abritent encore tigres et dholes, tandis qu'à Bornéo le tigres est absent, et que ces grands prédateurs ont disparu de vastes zones où la civette persiste sans grande pression naturelle.
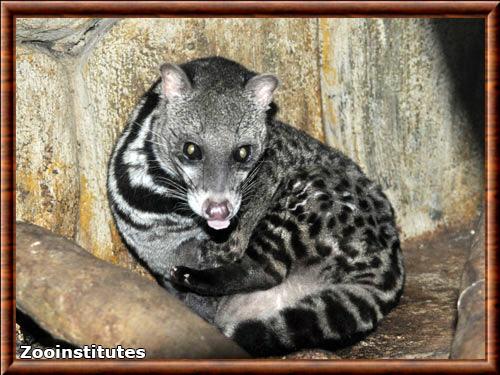
Crédit photo: Alex Kantorovich - Zooinstitutes
MENACES
Malgré sa grande tolérance écologique, la civette de Malaisie n'échappe pas aux pressions qui touchent les mammifères de l'Asie du Sud-Est insulaire, où l'un des taux de déforestation les plus élevés des tropiques a transformé les paysages en quelques décennies.
La perte d'habitat reste la menace la plus générale. La conversion des forêts de plaine en plantations de palmiers à huile, d'acacias et d'hévéas, ainsi que l'exploitation forestière et l'extension des routes, réduisent les surfaces disponibles et fragmentent les populations. Les synthèses consacrées aux effets de l'expansion du palmier à huile montrent que la majorité des espèces forestières disparaissent des plantations, même si quelques généralistes, dont probablement la civette, s'y maintiennent à des densités réduites.
La chasse est probablement la menace la plus sérieuse à l'échelle locale. Les collets posés pour capturer sangliers, cerfs et autres gibiers prennent de façon non sélective de nombreux petits carnivores, et les analyses de la chasse dans les forêts tropicales d'Asie ont montré que ce piégeage intensif a vidé de nombreux massifs de leur faune de taille moyenne, y compris dans des zones officiellement protégées. Les civettes sont aussi consommées localement ou vendues vivantes.
Le commerce d'animaux vivants et la capture pour la production de musc, historiquement concentrée sur d'autres espèces du genre, ont probablement touché la civette de Malaisie de façon ponctuelle. Ces prélèvements restent mal documentés, ce qui empêche d'en mesurer l'ampleur réelle. Les conflits avec l'homme sont fréquents : les civettes sont abattues parce qu'elles s'attaquent aux volailles, et la mortalité routière, importante sur les axes qui traversent les forêts, s'ajoute à ces pertes.
Dans les plantations, l'usage de rodenticides pour limiter les rongeurs fait peser un risque d'empoisonnement secondaire sur les carnivores qui consomment des proies intoxiquées, risque bien documenté chez d'autres prédateurs de ces milieux, mais non démontré chez la civette de Malaisie.
Dans les îles où l'espèce a probablement été introduite, comme Sulawesi et les Moluques, elle pourrait exercer une pression sur la petite faune indigène de vertébrés, sans que cet effet ait été quantifié. Les incendies liés aux années d'El Niño, qui ont ravagé de vastes superficies de forêts à Bornéo et à Sumatra, ainsi que le changement climatique, constituent des menaces additionnelles, difficiles à évaluer.
Dans l'ensemble, l'espèce paraît plus résiliente que les civettes forestières spécialisées, mais l'absence de suivis de densité sur le long terme rend difficile toute conclusion sur l'évolution réelle de ses effectifs, et un déclin local pourrait passer inaperçu.
© Klaus Rudloff - BioLib
All rights reserved (Tous droits réservés)CONSERVATION
La civette de Malaisie est classée dans la catégorie "Préoccupation mineure" (LC) sur la Liste rouge de l'IUCN, une évaluation fondée sur sa large répartition, sa tolérance aux habitats modifiés et sa présence dans de nombreuses aires protégées. Cette évaluation souligne toutefois que l'absence de suivi quantitatif limite la confiance accordée à cette conclusion, et que les tendances des populations demeurent mal connues.
L'espèce n'est pas inscrite aux annexes de la CITES et bénéficie d'une protection variable selon les juridictions. Dans plusieurs États ou provinces de son aire, notamment en Malaisie, les lois sur la faune protègent les viverridés ou réglementent leur chasse et leur détention, mais leur application dépend fortement des moyens locaux, et le piégeage non sélectif échappe largement au contrôle. La civette de Malaisie est enregistrée dans de nombreuses aires protégées de Bornéo, de Sumatra et de la péninsule malaise, parmi lesquelles la vallée de Danum et le parc national de Taman Negara, ainsi que dans des forêts de production gérées. Ces réseaux constituent l'essentiel du refuge garanti à l'espèce, mais leur efficacité dépend de la lutte contre le braconnage au collet.
Les besoins de recherche sont nombreux. Les estimations de densité demeurent rares, car l'absence de marques individuelles rend difficiles les analyses de capture-recapture classiques par pièges photographiques. Des méthodes alternatives, comme les modèles d'occupation et le marquage génétique non invasif, sont de plus en plus utilisées pour combler cette lacune.
Les mesures recommandées incluent le maintien de corridors forestiers dans les paysages de plantations, la limitation de l'exploitation forestière à faible impact, la lutte contre le piégeage et la sensibilisation des communautés locales à l'impact de ces pratiques. Dans les plantations, la conservation de bandes de végétation naturelle le long des cours d'eau offre des refuges et des voies de déplacement utiles à de nombreux petits carnivores.
Un autre enjeu tient à la clarification du statut des populations de Sulawesi, des Moluques et des Philippines. Si elles sont issues d'introductions, elles ne relèvent pas de la même logique de conservation que les populations de la Sonde et peuvent être considérées comme exotiques; dans le cas contraire, elles représenteraient des lignées d'un intérêt particulier. Les populations captives sont peu nombreuses et ne jouent aucun rôle dans la conservation de l'espèce, qui ne justifie pas à ce stade de programme d'élevage. Les efforts doivent donc se concentrer sur la protection des habitats et la réduction du piégeage.
Auteur: Larisa Artemyeva
 CC0 (Domaine public)
TAXONOMIE
L'histoire taxonomique de la civette de Malaisie s'inscrit dans celle du genre Viverra, créé par Linné en 1758 pour regrouper des civettes dont l'espèce type est la grande civette indienne (Viverra zibetha). Le nom de genre vient du latin viverra, qui désignait le furet ou un petit mustélidé employé à la chasse au lapin, ce qui illustre l'ancienne confusion entre viverridés et mustélidés.
L'espèce a été décrite en 1832 par le zoologiste britannique John Edward Gray sous le nom de Viverra tangalunga, à partir d'un spécimen provenant de l'archipel malais. L'épithète est tirée d'un nom vernaculaire malais, rendu par tenggalung ou tangalung, qui désigne la civette dans plusieurs langues de la région.
Tout au long du XIXe siècle, la taxonomie des civettes d'Asie du Sud-Est est restée confuse. Les naturalistes, qui disposaient de peaux souvent dépourvues de données précises de provenance, rattachaient fréquemment les spécimens de la péninsule, de Sumatra et de Bornéo à la grande civette indienne, ou décrivaient comme espèces distinctes des variantes de coloration individuelle. Plusieurs noms publiés à cette époque pour des populations insulaires sont aujourd'hui considérés comme des synonymes.
La première grande clarification date des travaux de Reginald Innes Pocock qui, dans les années 1930, a revu les viverridés orientaux à partir de la morphologie du crâne, de la denture et de la coloration, et a délimité plus nettement les espèces du genre Viverra ainsi que celles du genre voisin Viverricula. Il a notamment fixé les caractères qui distinguent la civette de Malaisie de grande civette indienne et de civette à grandes taches, parmi lesquels la taille inférieure, les marques cervicales atténuées et les annelures caudales faibles. Sa synthèse de 1939, dans la Fauna of British India, est restée longtemps une référence.
Dans la seconde moitié du XXe siècle, des listes de référence successives, dont celle de Corbet et Hill, ont stabilisé la nomenclature en reconnaissant quatre espèces de Viverra, parmi lesquelles Viverra tangalunga. Wozencraft a repris ce cadre dans l'édition de 2005 de Mammal Species of the World, qui reste la référence usuelle.
Les approches moléculaires ont éclairé la place du genre dans l'arbre des féliformes. Les travaux de Gaubert et Veron en 2003, puis de Gaubert et Cordeiro-Estrela en 2006, ont montré que les viverridés au sens ancien forment un ensemble non monophylétique, que les linsangs asiatiques (Prionodon) sont le groupe frère des félidés, et que les Viverrinae, dont font partie les civettes terrestres du genre Viverra, se divisent en lignées asiatiques et africaines, en accord avec des échanges fauniques entre les deux continents.
La taxonomie infraspécifique de Viverra tangalunga reconnaît traditionnellement deux sous-espèces valides au sein des grandes bases de données zoologiques internationales.
- Viverra tangalunga tangalunga : est la sous-espèce. Elle englobe l'écrasante majorité des populations de l'espèce à travers l'ensemble de son aire de répartition géographique. Elle se rencontre depuis la péninsule Malaise, Singapour et Sumatra jusqu'à Bornéo, englobant également les populations insulaires de Bangka, Karimata, de l'archipel de Riau-Lingga, ainsi que les populations introduites aux Philippines, à Célèbes et dans l'archipel des Moluques. Cette forme nominale présente toutes les caractéristiques morphologiques typiques décrites pour l'espèce, avec une variabilité individuelle notable dans l'intensité de la coloration de fond du pelage et la netteté des taches noires sur les flancs, sans qu'aucune divergence morphométrique constante ne permette d'isoler les différentes populations insulaires.
- Viverra tangalunga lankavensis : a été décrite en 1920 par les zoologistes britanniques Herbert Christopher Robinson et Cecil Boden Kloss à partir de spécimens collectés sur l'île de Langkawi, située au large de la côte nord-ouest de la péninsule Malaise dans le détroit de Malacca. Cette forme insulaire endémique de Langkawi a été distinguée à l'origine sur la base de légères différences de taille corporelle et de nuances dans la teinte générale de sa fourrure, jugée un peu plus pâle et plus grise que celle des spécimens de Sumatra et de la péninsule Malaise continentale. Cependant, de nombreux mammalogistes contemporains soulignent que la validité taxonomique de cette population demeure incertaine et nécessite une révision systématique approfondie appuyée par des analyses génétiques modernes, les variations observées pouvant relever d'une simple plasticité phénotypique insulaire.
Parallèlement à cette classification classique en deux sous-espèces, les recherches phylogéographiques menées par Veron et ses collègues en 2014 ont mis en lumière une singularité génétique remarquable chez les civettes peuplant l'île indonésienne de Belitung, située entre Sumatra et Bornéo dans la mer de Java. Bien que cette population n'ait pas été formellement élevée au rang de sous-espèce distincte sur le plan nomenclatural, elle présente une divergence génétique marquée par rapport à toutes les autres populations connues de la région du Sunda. Les chercheurs et les experts de l'IUCN recommandent par conséquent de considérer les individus de Belitung comme une unité évolutive significative (ESU) à part entière, justifiant une attention particulière dans les programmes de recherche taxonomique et de gestion de la biodiversité.
CLASSIFICATION
| Nom commun | Civette de Malaisie |
| Autres noms | Civette malaise Tangalung |
| English name | Malayan civet |
| Español nombre | Civeta malaya |
| Règne | Animalia |
| Embranchement | Chordata |
| Sous-embranchement | Vertebrata |
| Super-classe | Tetrapoda |
| Classe | Mammalia |
| Sous-classe | Theria |
| Infra-classe | Eutheria |
| Ordre | Carnivora |
| Sous-ordre | Feliformia |
| Famille | Viverridae |
| Sous-famille | Viverrinae |
| Genre | Viverra |
| Nom binominal | Viverra tangalunga |
| Décrit par | John Edward Gray |
| Date | 1832 |
Satut IUCN |  |
SOURCES
* Liens internes
 Liste Rouge IUCN des espèces menacées
Mammal Species of the World (MSW)
Système d'information taxonomique intégré (ITIS)
* Liens externes
Global Biodiversity Information Facility (GBIF)
* Bibliographie
Gray, J. E. (1832). On the family of Viverridae and its generic sub-divisions, with an enumeration of the species of several new ones. Proceedings of the Committee of Science and Correspondence of the Zoological Society of London, 1832(2), 63-68.
Jennings, A.P. & Veron, G. (2009). Family Viverridae (Civets, Genets and Oyans). In : Wilson, D.E. & Mittermeier, R.A. (dir.), Handbook of the Mammals of the World, vol. 1 : Carnivores. Lynx Edicions, Barcelone, p. 174-232.
Payne, J., Francis, C.M. & Phillipps, K. (1985). A Field Guide to the Mammals of Borneo. The Sabah Society et WWF Malaysia, Kota Kinabalu.
Francis, C.M. (2008). A Field Guide to the Mammals of South-East Asia. New Holland, Londres.
Groves, C.P. (1976). The origin of the mammalian fauna of Sulawesi (Celebes). Zeitschrift für Säugetierkunde, 41 : 201-216.
Heaney, L.R. (1986). Biogeography of mammals in SE Asia : estimates of rates of colonization, extinction and speciation. Biological Journal of the Linnean Society, 28 : 127-165.
Corbet, G.B. & Hill, J.E. (1992). The Mammals of the Indomalayan Region : A Systematic Review. Oxford University Press, Oxford.
Heydon, M.J. & Bulloh, P. (1996). The impact of selective logging on sympatric civet species in Borneo. Oryx, 30 : 31-36.
Nowak, R.M. (1999). Walker's Mammals of the World, 6e éd. Johns Hopkins University Press, Baltimore.
Colon, C.P. (2002). Ranging behaviour and activity of the Malay civet (Viverra tangalunga) in a logged and an unlogged forest in Danum Valley, East Malaysia. Journal of Zoology, 257 : 473-485.
Sunquist, M. & Sunquist, F. (2002). Wild Cats of the World. University of Chicago Press, Chicago.
Corlett, R.T. (2007). The impact of hunting on the mammalian fauna of tropical Asian forests. Biotropica, 39 : 292-303.
Fitzherbert, E.B., Struebig, M.J., Morel, A., Danielsen, F., Brühl, C.A., Donald, P.F. & Phalan, B. (2008). How will oil palm expansion affect biodiversity ? Trends in Ecology & Evolution, 23 : 538-545.
Mathai, J., Hon, J., Juat, N., Peter, A. & Gumal, M. (2010). Small carnivores in a logging concession in the Upper Baram, Sarawak, Borneo. Small Carnivore Conservation, 42 : 1-9.
Azlan, J.M. (2006). Mammal diversity and conservation in a secondary forest in Peninsular Malaysia. Biodiversity and Conservation, 15 : 1013-1025.
Pocock, R.I. (1933). The rarer genera of Oriental Viverridae. Proceedings of the Zoological Society of London, 1933 : 969-1035.
Wozencraft, W.C. (2005). Order Carnivora. In : Wilson, D.E. & Reeder, D.M. (dir.), Mammal Species of the World : A Taxonomic and Geographic Reference, 3e éd. Johns Hopkins University Press, Baltimore, p. 532-628.
Gaubert, P. & Veron, G. (2003). Exhaustive sample set among Viverridae reveals the sister-group of felids : the linsangs as a case of extreme morphological convergence within Feliformia. Proceedings of the Royal Society B, 270 : 2523-2530.
Gaubert, P. & Cordeiro-Estrela, P. (2006). Phylogenetic systematics and tempo of evolution of the Viverrinae (Mammalia, Carnivora, Viverridae) within feliformians : implications for faunal exchanges between Asia and Africa. Molecular Phylogenetics and Evolution, 41 : 266-278.
Pocock, R.I. (1939). The Fauna of British India, including Ceylon and Burma. Mammalia, vol. 1 : Primates and Carnivora (in part), Families Felidae and Viverridae. Taylor & Francis, Londres.