
Prionodontidae
Les prionodontidés (Prionodontidae) forment une petite famille de mammifères carnivores propre aux forêts d’Asie du Sud-Est et aux contreforts de l’Himalaya. Elle ne compte aujourd’hui qu’un seul genre, Prionodon, et deux espèces vivantes, le linsang rayé et le linsang tacheté. Longtemps classés parmi les Viverridae à cause de leur silhouette allongée et de leur pelage maculé, les linsangs asiatiques sont désormais reconnus, grâce aux données moléculaires, comme le groupe frère des Felidae. Discrets, nocturnes et arboricoles, ils comptent parmi les petits carnivores les moins étudiés d’Asie.
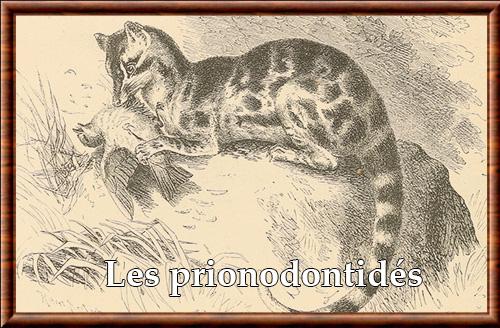
Auteur original: Brehm, AE (Alfred Edmund)
 CC0 (Domaine public)
 DESCRIPTION
Les linsangs asiatiques sont de petits carnivores à la silhouette étirée et gracile, que l’on compare volontiers à une genette en miniature. Le corps mesure entre 35 et 45 cm de la tête à la base de la queue, celle-ci atteignant presque la même longueur, et la masse adulte se situe le plus souvent entre 500 et 800 g, le linsang rayé étant en moyenne un peu plus grand que le linsang tacheté. Les membres sont courts, le cou allongé, la tête étroite avec un museau effilé, des yeux assez grands, adaptés à la vie nocturne, et des oreilles arrondies. La queue, longue et cylindrique, est annelée de sombre sur toute sa longueur, ce qui renforce l’allure serpentine de l’animal lorsqu’il se faufile dans la végétation.
Le pelage, court et dense, est de teinte crème, jaunâtre ou brun clair, et marqué de grandes taches brun foncé à noires. Chez le linsang rayé, ces taches se soudent en larges bandes transversales sur les flancs et le dos, alors que le linsang tacheté porte des marques plus nettement individualisées, de forme arrondie. Chez les deux espèces, des bandes sombres longitudinales ornent la nuque et le haut du dos.
Les caractères anatomiques sont ceux qui ont fait l’originalité du groupe. Les griffes sont rétractiles et protégées par des gaines cutanées, un dispositif inhabituel parmi les viverridés et qui rappelle celui des félidés ; Horsfield avait d’ailleurs insisté dès 1822 sur cette ressemblance. Les glandes périnéales, si caractéristiques des civettes et des genettes, font défaut. Le crâne présente un rostre modérément allongé, une crête sagittale bien marquée et une bulle tympanique dont l’organisation, proche de celle des chats, compte parmi les arguments morphologiques en faveur d’un lien avec les Felidae. La formule dentaire comprend trente-huit dents, avec trois incisives, une canine, quatre prémolaires à la mâchoire supérieure et trois incisives, une canine, quatre prémolaires et deux molaires à l’inférieure, et des carnassières tranchantes, adaptées à la capture de petites proies vertébrées. Le nom du genre, Prionodon, signifie « dent en scie » et fait référence à cette denture.
Les différences entre espèces portent surtout sur la taille, le dessin du pelage et certains détails crâniens. Chez le linsang rayé, les populations de la Sonde insulaire sont en moyenne de plus petite taille que celles de la péninsule malaise. Le dimorphisme sexuel est peu marqué, les mâles étant à peine plus grands que les femelles. L’ensemble de ces traits traduit un mode de vie scansorial : l’animal grimpe avec aisance et chasse aussi bien dans les branches qu’au sol, la longue queue servant de balancier.
HABITAT
Les Prionodontidae sont strictement indomalais, mais leurs deux espèces occupent des territoires largement complémentaires. Le linsang tacheté (Prionodon pardicolor) habite le versant sud de l’Himalaya et l’Asie du Sud-Est continentale : on le rencontre du Népal, du Sikkim et du Bhoutan jusqu’au nord-est de l’Inde, puis au Myanmar, dans le sud de la Chine, en Thaïlande, au Laos, au Vietnam et au Cambodge. Le linsang rayé (Prionodon linsang) est pour sa part un habitant de la région de la Sonde : il est connu du sud du Myanmar et du sud de la Thaïlande, de la péninsule malaise, de Sumatra, de Bornéo, où il atteint le Brunei, de Java, ainsi que des îles de Bangka et de Belitung. Les deux aires se rejoignent sans doute dans la partie méridionale de la péninsule indochinoise, mais la rareté des observations empêche de préciser l’existence éventuelle d’une zone de recouvrement. Cette discontinuité apparente doit être interprétée avec prudence : elle reflète autant l’effort d’échantillonnage, très inégal selon les régions, que de véritables lacunes de présence.
Le linsang rayé fréquente avant tout les forêts tropicales humides de plaine et de moyenne montagne, primaires comme secondaires. Il a été signalé du niveau de la mer jusqu’à environ 2 700 m d’altitude, et quelques mentions proviennent de lisières ou de zones proches de plantations de palmiers à huile, ce qui suggère une certaine tolérance aux milieux perturbés, sans que l’on sache si ces animaux y entretiennent des populations durables. Le linsang tacheté occupe une gamme d’habitats plus variée, qui va des forêts sempervirentes et semi-sempervirentes d’Indochine aux forêts subtropicales de feuillus et de pins des contreforts himalayens, en passant par les forêts de bambous et les formations secondaires, de la plaine jusqu’aux forêts de montagne.
Dans tous les cas, la présence d’un couvert arboré continu semble déterminante. Ces animaux semblent se reposer dans des cavités d’arbres, des enchevêtrements de racines ou une végétation dense, et utilisent à la fois la strate arborée et le sol, ce qui rend leur détection particulièrement délicate. Les pièges photographiques posés au sol n’enregistrent qu’une partie de leur activité, et la plupart des mentions proviennent d’observations fortuites, de captures par des chasseurs ou de rares images automatiques. Les limites réelles de leur aire, leurs préférences d’habitat et leurs densités restent donc mal connues, et les cartes de distribution disponibles reposent en grande partie sur des modèles et sur des mentions éparses plutôt que sur des inventaires systématiques.
ÉCOLOGIE
Les linsangs sont des carnivores opportunistes, dont le régime n’est connu que par quelques contenus stomacaux et par des observations en captivité. Ils capturent de petits vertébrés, essentiellement des rongeurs, mais aussi des oiseaux, des lézards et des grenouilles, et complètent ce régime avec des insectes et d’autres invertébrés ; les œufs et les oisillons prélevés dans les nids pourraient également être consommés. La morphologie suggère une chasse à l’approche lente, suivie d’une saisie rapide à l’aide des griffes rétractiles, tandis que la denture tranchante sert à tuer et à découper la proie. Le caractère scansorial de ces animaux leur permet de prospecter les branches, les troncs et le sol, et d’exploiter ainsi des proies que d’autres petits carnivores, moins agiles, atteignent difficilement. Dans les régions où les rongeurs abondent, ces proies pourraient constituer une part importante du régime, ce qui conférerait aux linsangs un rôle de régulateurs, mais ce rôle n’a jamais été quantifié. Aucune étude n’a comparé de façon rigoureuse le régime des deux espèces, de sorte que d’éventuelles différences de niche trophique demeurent hypothétiques.
La biologie de la reproduction est très mal documentée et repose surtout sur de rares observations d’animaux captifs. Les portées comptent le plus souvent deux ou trois petits, et les femelles du linsang tacheté pourraient donner naissance à deux portées par an, mais la durée de gestation, l’âge de la maturité sexuelle et la saisonnalité des naissances sont encore trop imparfaitement connus pour être décrits de manière fiable. Les jeunes naissent vraisemblablement dans un abri, cavité d’arbre ou gîte garni de végétation, et rien ne permet de dire que les deux espèces diffèrent sur ce point. D’après des observations rapportées dans la littérature de référence, les femelles demeureraient auprès de leur mère jusqu’à la maturité, tandis que les mâles s’éloigneraient après le sevrage, ce qui impliquerait une dispersion biaisée vers les mâles ; cette information mérite toutefois confirmation. En captivité, des individus de linsang rayé ont vécu plus de dix ans, ce qui donne une indication de la longévité potentielle de ces petits carnivores.
Les linsangs sont nocturnes et, pour autant que l’on sache, essentiellement solitaires. Ils passent vraisemblablement la journée à l’abri dans la végétation dense ou dans des cavités, et ne deviennent actifs qu’à la tombée de la nuit. Leur déplacement associe une marche discrète au sol, une progression souple le long des branches et des sauts d’un support à l’autre, la longue queue jouant le rôle de balancier. Les enregistrements par pièges photographiques confirment une activité surtout nocturne, mais ils restent trop peu nombreux pour décrire un rythme journalier précis. La taille des domaines vitaux, la structure sociale, l’organisation territoriale et les modes de communication n’ont fait l’objet d’aucune étude de terrain approfondie, et pratiquement aucune donnée de télémétrie n’est disponible. Cette lacune constitue l’un des principaux obstacles à l’évaluation de l’état de conservation des deux espèces, et fait des linsangs asiatiques l’un des groupes de féliformes les moins connus.
MENACES ET CONSERVATION
Les deux espèces sont classées dans la catégorie « Préoccupation mineure » de la Liste rouge de l’UICN, l’évaluation du linsang rayé datant de 2016 et celle du linsang tacheté ayant fait l’objet d’une version amendée en 2024. Ce classement repose sur la vaste étendue de leur aire de répartition et sur la persistance supposée de populations dans de nombreuses aires protégées, mais il traduit autant une insuffisance de données qu’un état de santé démontré : les densités, les tendances démographiques et la structure des populations sont pratiquement inconnues. Sur le plan réglementaire, le linsang tacheté figure à l’annexe I de la CITES, et le linsang rayé à l’annexe II.
La principale menace est la perte et la fragmentation des forêts. La région de la Sonde compte parmi les régions du monde où la déforestation a été la plus rapide, sous l’effet de l’exploitation forestière, de l’extension des plantations de palmiers à huile, d’hévéas et d’arbres à pâte à papier, et des incendies, et l’habitat du linsang rayé s’y réduit. Dans l’aire du linsang tacheté, l’agriculture itinérante, l’exploitation du bois, l’urbanisation et la construction d’infrastructures morcellent également les massifs forestiers, y compris sur les contreforts himalayens.
À cette pression s’ajoute la chasse. Les linsangs sont régulièrement pris dans des pièges et des collets posés pour d’autres espèces, puis consommés ou vendus ; ils apparaissent aussi sur les marchés d’animaux sauvages du sud de la Chine et d’Asie du Sud-Est, où ils sont proposés vivants ou morts. À Murlen, dans l’État indien du Mizoram, la carcasse d’un linsang tacheté a ainsi été découverte chez un chasseur local au moment même où les premières images photographiques de l’espèce dans le parc étaient publiées, ce qui illustre la coexistence fréquente de la présence de l’espèce et d’un prélèvement local.
Les priorités de conservation découlent de ces constats. Elles comprennent la réalisation d’inventaires systématiques, notamment à l’aide de pièges photographiques placés dans les arbres, la clarification de la structure génétique du linsang rayé, le maintien de la continuité des couverts forestiers et la lutte contre le piégeage non sélectif à l’intérieur même des aires protégées. La revue Small Carnivore Conservation, publiée par le groupe de spécialistes de l’UICN, demeure l’un des principaux lieux où s’accumulent les mentions de ces espèces, et illustre le caractère encore fragmentaire de la connaissance disponible.
LES ESPÈCES
La famille ne comprend qu’un seul genre vivant, Prionodon Horsfield, 1822, et deux espèces actuelles. Le rang spécifique du taxon gracilis, parfois traité comme espèce distincte du linsang rayé de Sumatra et de la péninsule, reste discuté, et plusieurs noms plus anciens, tels que maculosus Gray, sont aujourd’hui placés en synonymie. À ces deux espèces vivantes s’ajoute, selon les publications les plus récentes, une espèce fossile chinoise. La liste complète est la suivante :
* Linsang rayé (Prionodon linsang
- Prionodon linsang linsang)
- Prionodon linsang gracilis)
* Linsang tacheté (Prionodon pardicolor
* Prionodon hualongensis †
TAXONOMIE
Le premier linsang à recevoir un nom scientifique est le linsang rayé, décrit en 1821 par Thomas Hardwicke sous le nom de Viverra ? linsang à partir d’un spécimen de Malacca, le point d’interrogation reflétant l’incertitude de l’auteur sur son rattachement générique. L’année suivante, Thomas Horsfield, dans ses Zoological Researches in Java, fonda le genre Prionodon à partir d’un animal de Java, dont l’espèce-type est gracilis, en insistant sur les ressemblances de l’animal avec les chats plutôt qu’avec les civettes.
En 1841-1842, Brian Houghton Hodgson décrivit une seconde espèce, Prionodon pardicolor, d’après des animaux du Sikkim et du Népal. Dans sa grande révision des Viverridae publiée en 1864, John Edward Gray reconnut plusieurs formes nominales de linsangs, dont maculosus, de Birmanie méridionale et du Darjeeling. Ces noms ont ensuite été ramenés en synonymie, et la systématique du groupe s’est stabilisée autour de deux espèces, comme l’a résumé Pocock dans sa Fauna of British India en 1939. Ce consensus morphologique plaçait les linsangs asiatiques parmi les Viverridae, aux côtés des civettes et des genettes, et les rapprochait souvent du linsang africain Poiana, dont l’allure leur était si semblable. Cette classification a perduré jusqu’au début du XXIe siècle : Mammal Species of the World, en 2005, range encore le genre Prionodon dans une sous-famille Prionodontinae des Viverridae. L’originalité de ses griffes rétractiles, de ses glandes périnéales absentes et de sa bulle tympanique avait certes été relevée, mais n’avait pas suffi à remettre en cause ce placement. Le tournant est venu des données moléculaires. En 2003, Philippe Gaubert et Géraldine Veron, en échantillonnant de façon exhaustive les Viverridae, ont montré que les linsangs asiatiques formaient le groupe frère des Felidae, tandis que le linsang africain était apparenté aux genettes. La ressemblance entre les deux groupes de linsangs résulte donc d’une convergence morphologique extrême, et non d’une parenté étroite. Les auteurs ont proposé de rétablir une famille propre, les Prionodontidae. Cette position a été renforcée par des analyses ultérieures sur les Viverrinae et sur l’ensemble des féliformes, qui placent la séparation entre Prionodontidae et Felidae il y a plus de trente millions d’années. Les travaux récents portent désormais sur la diversité interne de la famille. L’analyse de mitogénomes de spécimens de musée, publiée en 2020 par Paijmans et ses collègues, estime à environ douze millions d’années la divergence entre les deux espèces, et révèle chez le linsang rayé deux lignées matrilinéaires séparées d’environ un million d’années, parmi les spécimens de Sumatra, de Bornéo et de Java. Ces résultats, fondés sur un échantillon restreint, relancent la question du rang taxonomique de gracilis et justifieront des études génétiques plus larges.